细胞膜与跨膜运输
先看下面这张红细胞膜的电镜照片。把细胞内外分开的,只是两道很靠近的暗线;旁边的模型才把夹在其中的脂质和蛋白质展开给我们看。脂双层厚约 5 nm,已经薄到普通光学显微镜分辨不出它的两面,却要挡住大多数离子,留住细胞内的代谢物,还得允许营养物进入、信号传递和整个细胞变形。厚度没多少,工作倒是排得很满。1
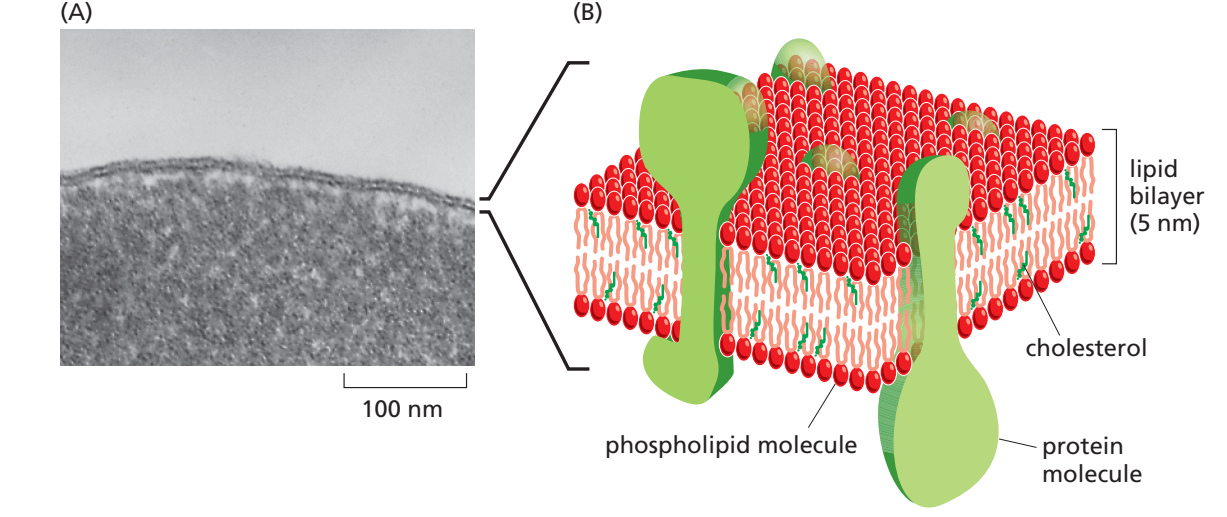
左侧是实际膜截面,右侧是帮助理解组成的模型。电镜的明暗来自样品处理与成像对比,不能把每条暗线直接当作一排磷脂头部。注意左图的 100 nm 比例尺与右图标出的双层厚度。2
膜能做这些事,与它的材料和组织方式有关。脂质构成连续屏障,蛋白质在其中开辟选择性的通路;两者都在运动,膜的两面却仍维持着不同的组成。先把这张膜看清楚,再去追踪一个离子或一个葡萄糖分子,就容易理解运输为什么会这样发生。
脂双层怎样把内外分开
两亲分子、自组装与封闭
一个常见的膜磷脂有能与水相互作用的头部,也有两条不喜欢暴露在水中的烃链。把很多这样的分子放在水中,烃链聚到一起、头部留在表面的排列比较有利。双尾膜脂的形状适合排成双层:一层头部朝外侧水相,另一层朝内侧水相,两层的尾部在中间相遇。脂质结构的细节可以回看膜脂,这里先记住这种空间安排。
“疏水”很容易让人想成两条尾巴互相吸引、拼命拥抱。实际的自组装包含水的作用:非极性表面分散暴露时,会影响周围水分子的排列;把这些表面聚在一起,可以减少这种接触。烃链之间的范德华作用、头基之间的作用以及水和离子,也共同影响双层是否稳定。
一片双层仍有一个麻烦:边缘。头部可以遮住上下两面,却遮不住切口处露出的烃链。让片层弯曲并闭合,便能消除这圈边缘。因此,合适条件下脂质会形成封闭囊泡,小的暂时性破口也可能自行封合。这个结果并不需要细胞先发出一道“请闭合”的指令。
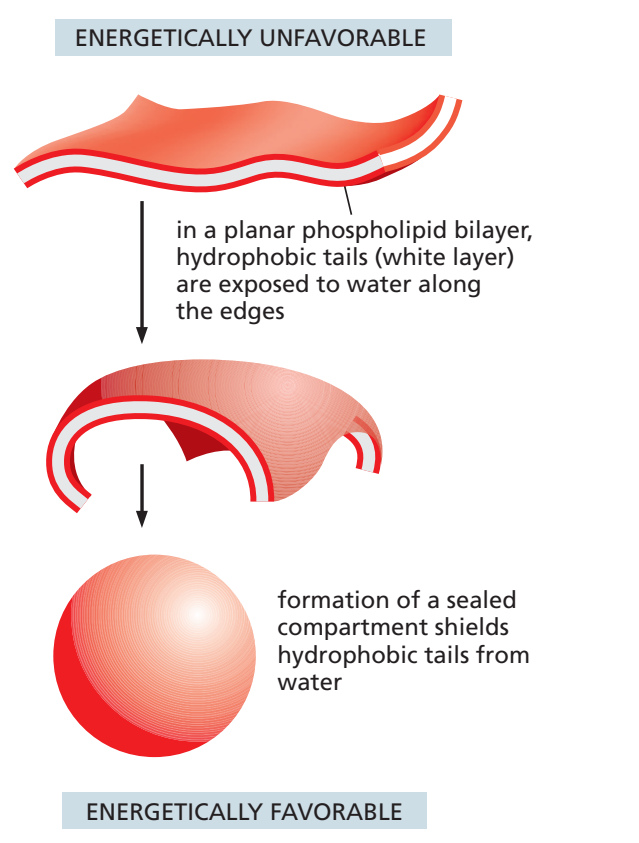
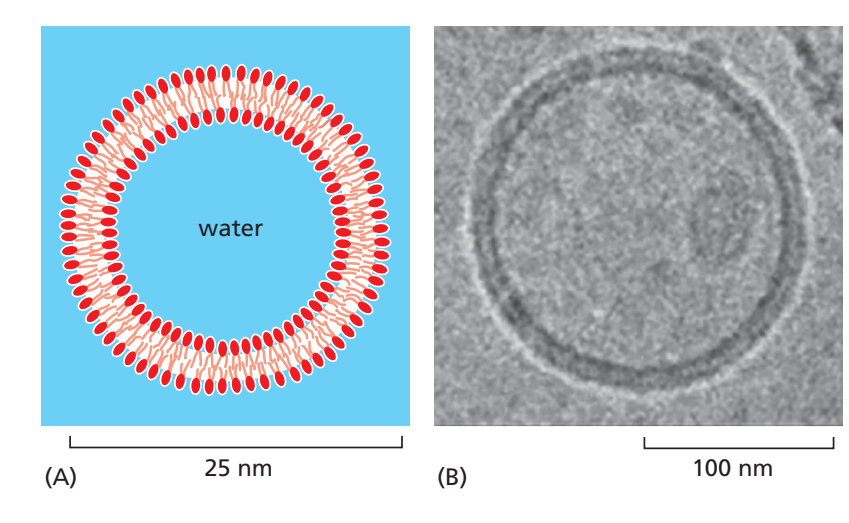
这种人工脂质囊泡称为脂质体(liposome)。它让我们可以先研究一张成分已知的膜,再逐一加入蛋白质,观察通透性或运输能力怎样改变。脂质体也不会在水中一碰面就自动融合:两张膜表面的水合层构成接近的障碍,生物膜融合还需要相应蛋白质帮助克服它。能自行封闭,与能随意融合,是两件事。
什么能直接穿过脂双层
穿膜的分子必须先进入双层内部,再从另一面出来。O\(_2\)、CO\(_2\) 等小分子容易进入疏水环境,类固醇激素等脂溶性分子也较容易通过;水、尿素等小而不带电的极性分子也能通过,但速率通常较低。葡萄糖有许多羟基,进入疏水核心的代价已经很大;Na\(^+\)、K\(^+\) 等离子还带有电荷和周围的水合层,让它们直接钻过双层尤其困难。这里不能只按分子直径排队:一个小离子,完全可能比一个较大的疏水分子更难通过。5
低通透性为细胞留下了维持内外差别的机会。随后只需加入特定通道或载体,就能显著改变某一类物质的通量。许多细胞的快速水运输依赖水通道蛋白,也是这个道理;水能自行穿膜,并不意味着裸脂双层已经能满足所有组织的水通量。
膜里的分子一直在动
左右移动容易,换一面却很费劲
教科书常把磷脂画得整整齐齐,像两排站军姿的小人。那是为了让我们看懂双层,分子本身并没有这么守纪律。它们会侧向移动、绕长轴旋转,烃链也不断弯折。下面左图是分子模拟,更接近这种热运动下的杂乱状态;右图才把几种运动分开表示。
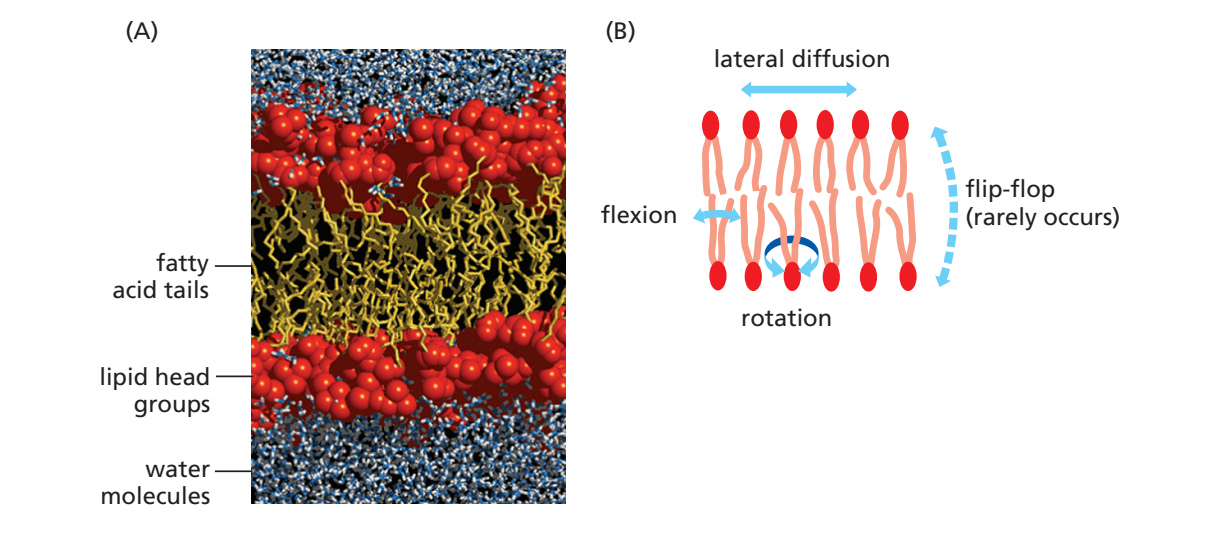
同一叶片中的侧向扩散很快;从一个叶片翻到另一个叶片,需要亲水头部穿过疏水核心,普通磷脂的自发翻转因此慢得多。左图为模拟,并非显微照片。6
双层中的每一层也称为一个叶片(leaflet)。分子在同一叶片内换邻居时,亲水头部仍接触水,烃链仍处在疏水环境;跨层翻转却要暂时破坏这个安排。于是,一张膜可以在平面内相当流动,同时长期保持两个叶片的组成不同。胆固醇只有一个较小的羟基需要跨过核心,其跨层移动通常比磷脂快,不能把所有膜脂的翻转速率视为相同。
脂肪酸链与胆固醇怎样改变膜的物性
烃链之间接触得越充分,越容易形成紧密、有序的排列。较长的饱和链有较多相互接触的部位,降温时也更容易排成较有序的状态;短链或带顺式双键的链则不容易如此紧密堆积。顺式双键处的弯折很直观:一排笔直的链中塞进几条带弯的,邻居们就很难再贴得严丝合缝。
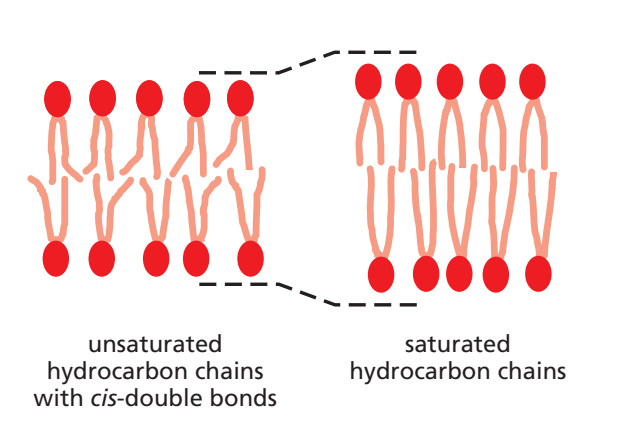
看双键造成的弯折怎样妨碍相邻链靠拢。图示比较的是堆积倾向,真实膜还含多种脂质和大量蛋白质。7
胆固醇的羟基靠近头部,刚性的甾环插在烃链之间,限制靠近头部的链段摆动,使这部分双层较难变形,也可降低小型水溶性分子的通透性。但它同时打乱整齐的结晶式排列,降低低温下膜脂排成凝胶状态的倾向。因此,“胆固醇增加还是降低流动性”需要带上温度、膜脂组成和测量对象来回答。把它记成一个永远朝同一方向拨动的开关,反而不如看一眼它插在哪里。1
膜的厚度和弯曲也与材料有关。较长的烃链通常形成较厚的疏水核心;头部与尾部占据的截面积不同,或两个叶片面积不匹配,则会使某些曲率更容易形成。蛋白质还能插入一侧叶片、搭起弯曲支架,或借助肌动蛋白和马达施力。出芽、融合和细胞器管网所需的曲率,就是脂质形状与这些蛋白质动作共同产生的。反过来,已经弯曲的膜面也会更容易容纳某些形状的脂质和蛋白质,进一步改变局部组成。
怎样知道膜蛋白也能移动
脂双层可以流动,嵌进去的蛋白质会不会被固定在原地?1970 年的人鼠细胞融合实验把这个问题处理得很漂亮:把两种细胞融合,用两种荧光分别认出人和小鼠的表面蛋白,再比较不同时间的标记位置。刚融合时,两种颜色主要各占一边;随后逐渐混合。只要能分清“原来属于哪边”,分子的移动就有了可追踪的标记。8
把两种细胞的表面拼在一起
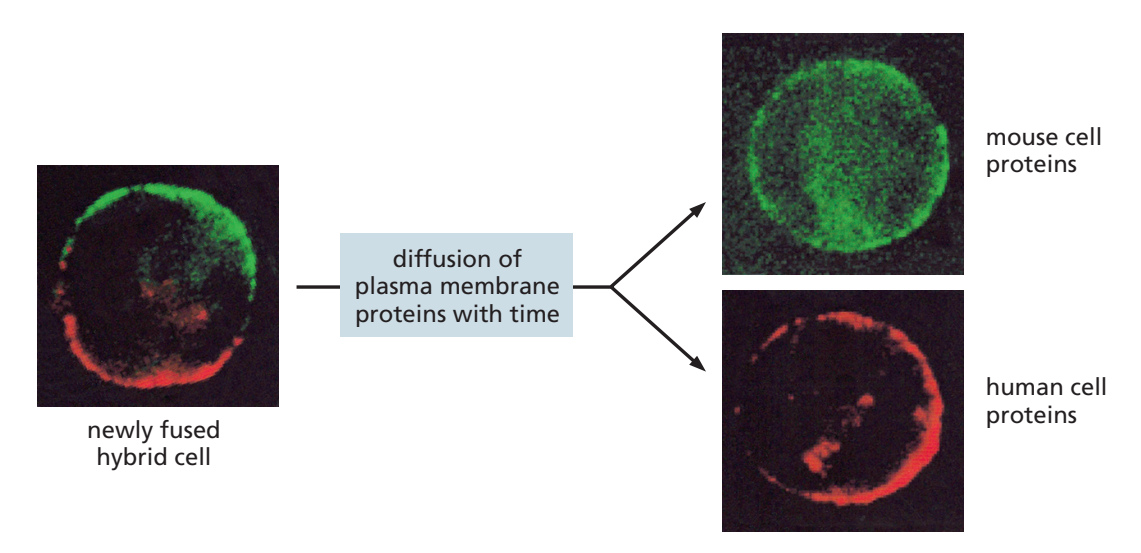
图中展示融合后的标记分布及后续混合。它支持表面蛋白能够侧向再分布;不同蛋白的速度、限制范围,还需要其他实验测量。9
Frye 与 Edidin 的实验让可移动膜蛋白的认识获得了直接支持。1972 年 Singer 与 Nicolson 提出的流动镶嵌模型,把连续脂双层与嵌入其中的两亲性蛋白组织起来;后来发展的荧光漂白恢复、单分子追踪等方法,进一步测量了运动的速率和限制。这里有一个时间顺序:后来的精细测量丰富了模型,并不是所有实验都在模型提出前已经做完。10
荧光漂白恢复(fluorescence recovery after photobleaching,FRAP)提供了另一种办法。先让目标膜分子带上荧光,再用一束强光把局部的荧光团漂白。这个小区域突然暗下去,周围却仍然发亮。如果带标记的分子能移动,未漂白的分子就会进入这里,局部亮度逐渐恢复。
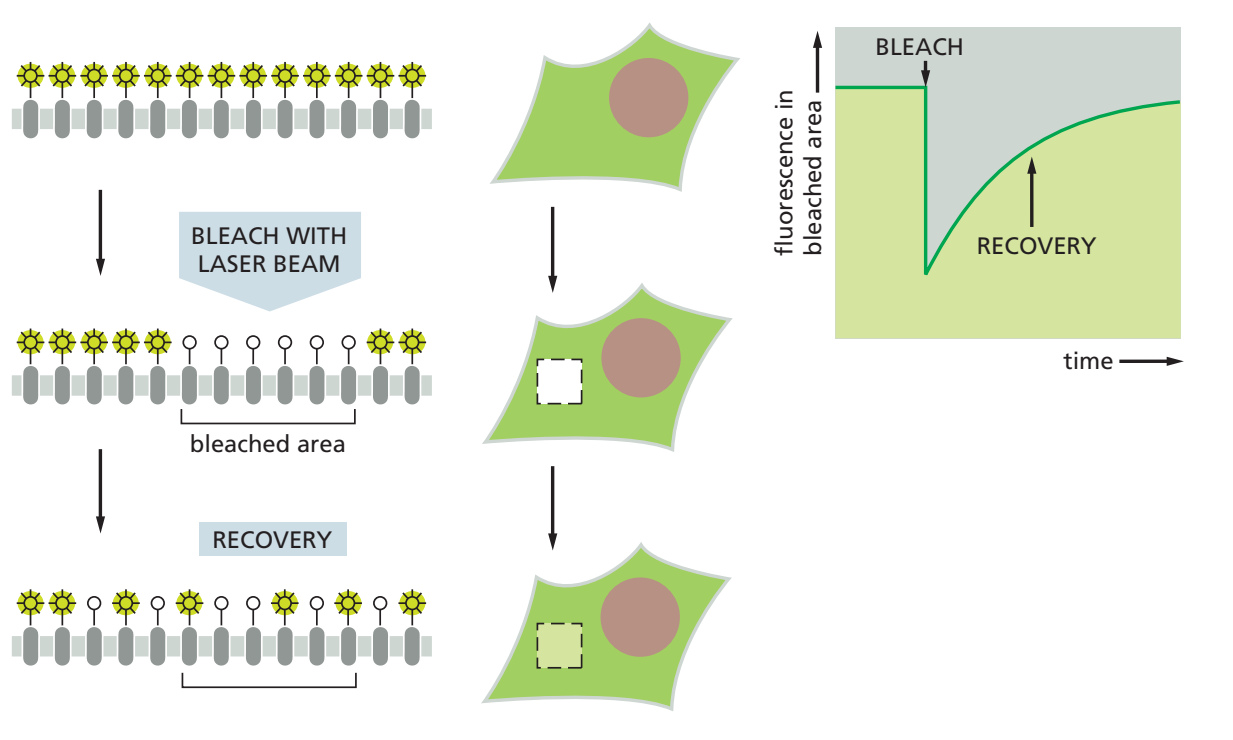
沿左侧三步看局部标记怎样变化,再读右侧曲线:漂白时骤降,之后恢复。恢复的是观测区域的亮度,不是原来被漂白的荧光团重新发光。11
恢复快慢可用来估计扩散相关参数;最终恢复到多少,还反映了实验时间内能参与交换的分子比例。分析时需要考虑漂白区域大小、观测时长,以及分子在膜与胞质之间的交换。单看一条没有完全回到起点的曲线,还不足以宣布“剩下的蛋白全被骨架钉住了”。
读图练习:暗区为什么又亮了?(自编)
假设目标蛋白只在膜平面内交换,实验期间可以忽略新蛋白合成。对同一种细胞,漂白一个小圆区和一个较大的圆区,都能观察到荧光恢复。这是否说明被漂白的蛋白被细胞修复了?两种区域的恢复时间能否不作修正地直接比较?
解析
局部恢复来自未漂白分子进入观测区域,已漂白分子也可离开。漂白改变了荧光团的发光能力,并没有把蛋白从膜上抹掉。区域尺度会影响扩散恢复所需的时间,因此比较恢复时间必须考虑漂白几何条件;不能把“区域更大、恢复更慢”直接解释为蛋白扩散能力下降。
流动的膜为什么还会分区
如果只看融合实验,很容易把膜想成一片可以任意游动的海面。把时间和空间分辨率再提高,情况就有趣了:一个分子可能先在很小的范围内兜圈子,过一阵才进入旁边的区域。
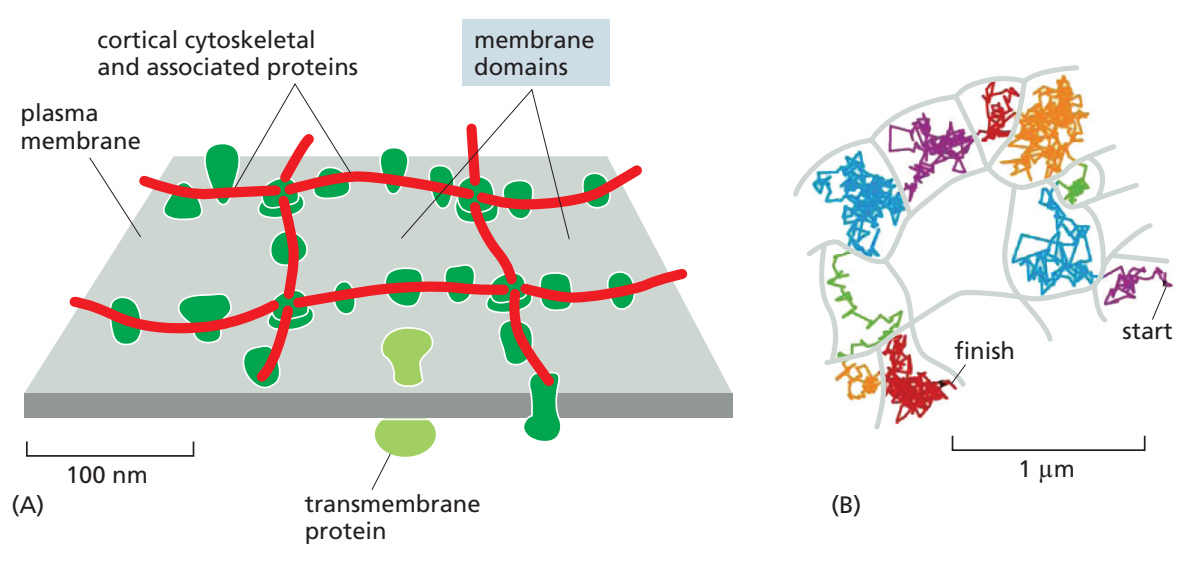
左图表示膜下骨架及其相连蛋白可能构成的围栏;右图为单分子轨迹,颜色帮助区分不同停留区。先看分子在哪里反复折返,再看它如何跨到相邻区域。12
膜下的肌动蛋白网、与它连接的跨膜蛋白,以及较大的蛋白复合体,都可能形成暂时的障碍。分子仍在热运动,只是它能进入的空间受到了限制。单分子追踪中的这种分区与跨区运动,常称为跳跃扩散;其尺度和持续时间依分子、细胞和测量条件而变。红细胞的 spectrin—actin 骨架则是膜与骨架共同工作的另一个清楚例子,详见红细胞变形能力。13
脂质也参与组织膜域。胆固醇和鞘脂有利于某些较有序的局部区域,蛋白质间相互作用、皮层骨架、曲率和两个叶片的耦联又会改变这些区域的寿命和组成。所谓脂筏,最好放在这样的动态背景中理解,而不要先在脑中画出一块边界永久不变的小岛。
分离出一份膜组分,等于看见了活细胞中的脂筏吗?
用低温去垢剂处理膜后,可以得到较难溶解的“去垢剂抗性膜”组分。但去垢剂本身会重新安排脂质和蛋白质,分离产物已经经历过一轮处理。它能提供组成与相互作用的线索;要判断活细胞中有没有相应的膜域,还应结合成像、动力学和扰动实验。把方法得到的组分直接命名成原位结构,容易在第一步就走得太远。14
一张膜的两面,各有各的工作
叶片组成与表面方向
既然磷脂很少自行翻到另一面,细胞就能让两个叶片保有不同配方。以人红细胞质膜为例,磷脂酰胆碱(PC)和鞘磷脂较多分布在外侧,磷脂酰乙醇胺(PE)与磷脂酰丝氨酸(PS)较多分布在胞质侧;糖脂的糖链伸向细胞外。看图时可以逐一认出同一种头部,比较它在两层中的数量。
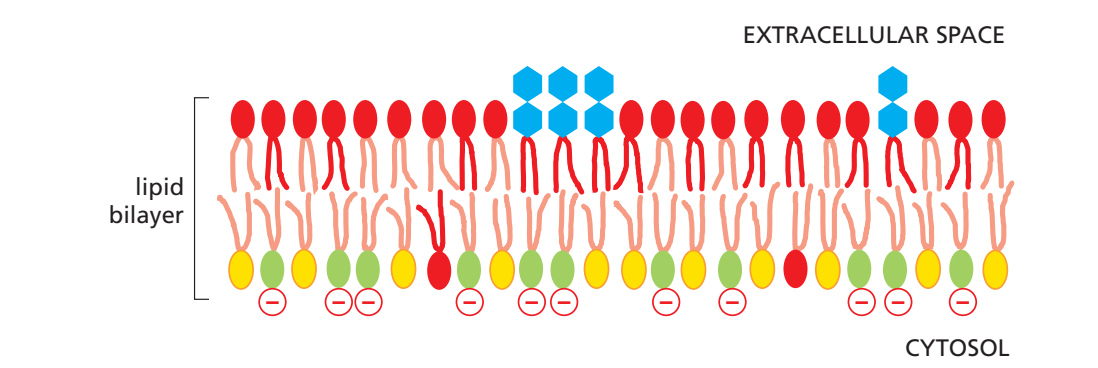
上方为细胞外侧,下方为胞质侧。图表示人红细胞中的典型分布,不能作为所有细胞膜通用的固定配方。15
胞质侧的 PS 和磷脂酰肌醇及其磷酸化衍生物,还为蛋白质提供带负电的结合表面和特定识别位点。受体、酶和膜骨架在这里装配,正好与外侧负责配体结合、细胞识别的表面相接。两侧的脂肪酸不饱和度和堆积也可以不同;例如对红细胞等哺乳动物膜的研究显示,外叶片相对富含较饱和的脂质。具体物性仍应随所测细胞与方法说明。16
| 膜面 | 常见的组成或朝向 | 与后文的联系 |
|---|---|---|
| 非胞质侧;质膜处即细胞外侧 | PC、鞘磷脂和糖脂较丰富,糖链伸向这一侧 | 细胞识别、外界配体结合;内吞后成为囊泡腔面 |
| 胞质侧 | PE、PS、磷脂酰肌醇及磷酸肌醇较丰富 | 招募信号蛋白、膜骨架、包被和胞质运输机器 |
翻转酶、外翻酶与扰乱酶
不容易自行跨层,对维持不对称很有利,却给膜生长出了道难题。新磷脂主要在内质网膜的胞质侧合成;如果它们全留在这里,两层就不能一起扩展。细胞因此需要帮助脂质跨层的蛋白质。
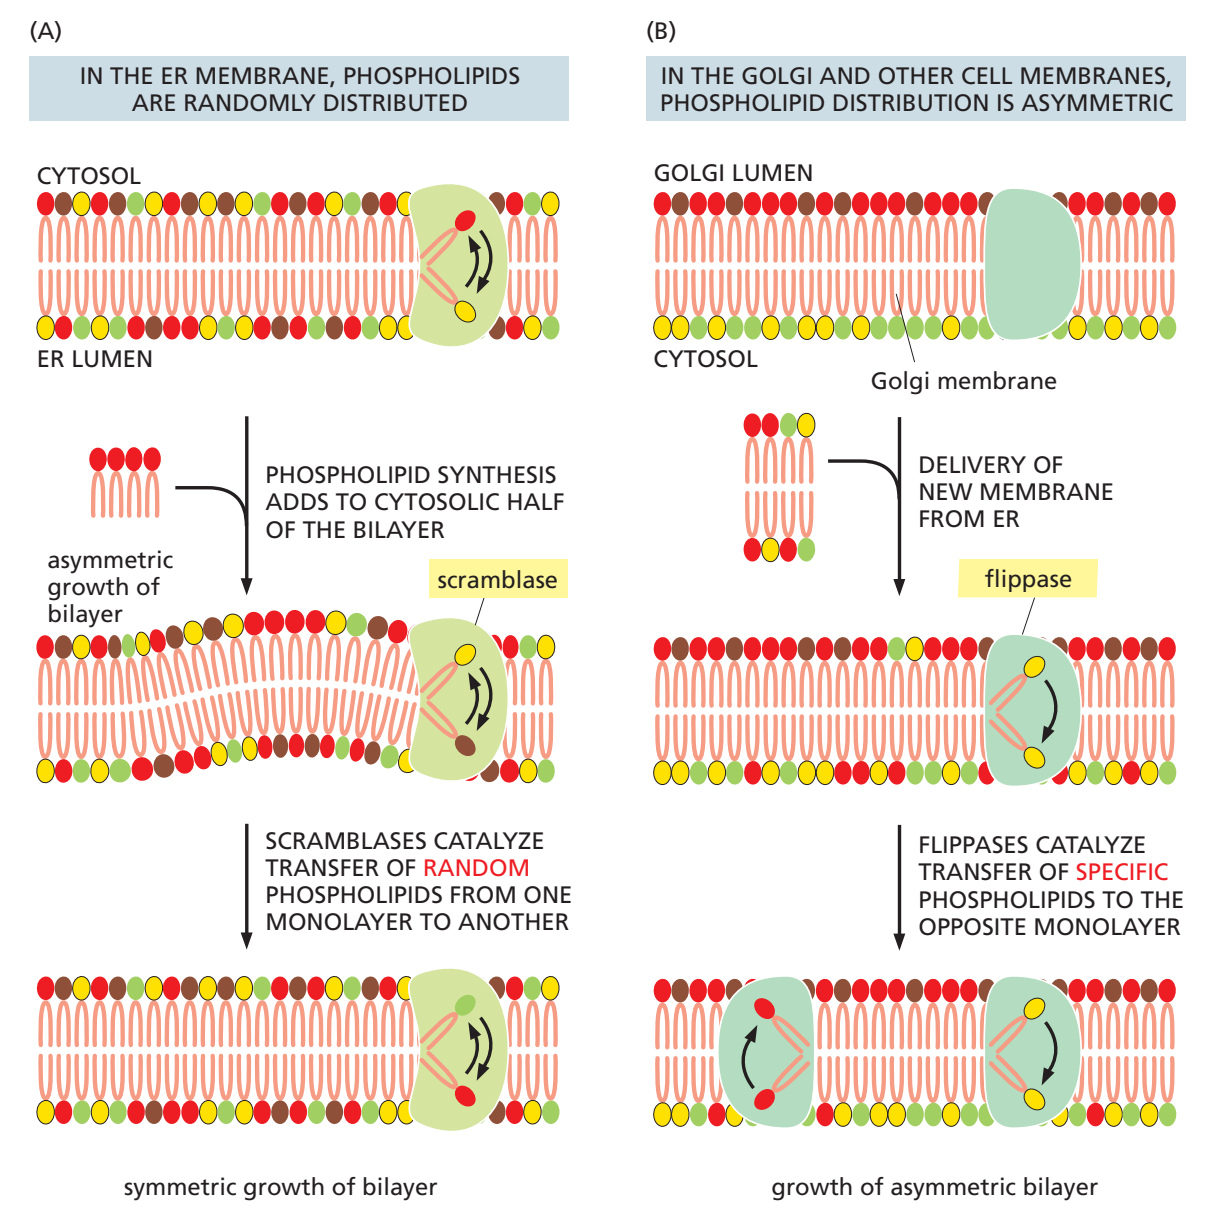
左图从“新脂质只加到胞质侧”开始,观察扰乱酶怎样让两层一起增长;右图显示定向转位如何改变组成。17
脂质扰乱酶(scramblase)降低脂质跨层的障碍,促进双向重分布,本身通常不直接用 ATP 把脂质泵向特定一侧。相对地,许多 P4 型 ATP 酶利用 ATP 将特定脂质转到胞质侧,常称为翻转酶;一部分 ABC 转运体将特定脂质送向非胞质侧,承担外翻酶功能。不同成员的底物范围并不一样,名称概括的是方向和作用,不能替代具体蛋白的选择性。
内质网中的持续重分布有助于膜生长;质膜上的某些扰乱酶则由信号激活。两个场景使用了相近的物理原理,却承担不同任务。
同样是 PS 外露,血小板和凋亡细胞在做不同的事
静息血小板把多数 PS 保持在胞质侧。强烈激活时,胞质 Ca\(^{2+}\) 上升,TMEM16F 相关脂质扰乱使 PS 暴露在外侧,负电表面有利于凝血反应复合体装配。其中包括 FIXa—FVIIIa 组成的内源性 X 因子酶复合体,以及 FXa—FVa 组成的凝血酶原酶复合体。这项促凝作用由外露 PS 承担,不能换写成 PC。18
凋亡细胞的 PS 外露常涉及受半胱天冬酶调节的 XKR8 等蛋白,并可成为吞噬清除的识别线索。看到“PS 在外面”,还要接着看是哪种细胞、发生在什么状态;同一个分子的朝向变化,在两个故事里有不同的后续。19
膜蛋白怎样嵌进去
蛋白质要留在双层内部,其接触烃链的表面也需要与这个环境相容。常见跨膜 \(\alpha\) 螺旋把疏水侧链朝向外侧,肽链骨架上的极性基团则通过螺旋内部的氢键得到满足。多条这样的螺旋可以围成有水的通路,或者形成能够结合底物的腔室。细菌、线粒体和叶绿体的外膜中还常见 \(\beta\) 桶,桶壁外侧接触脂质,内侧形成不同性质的孔道。
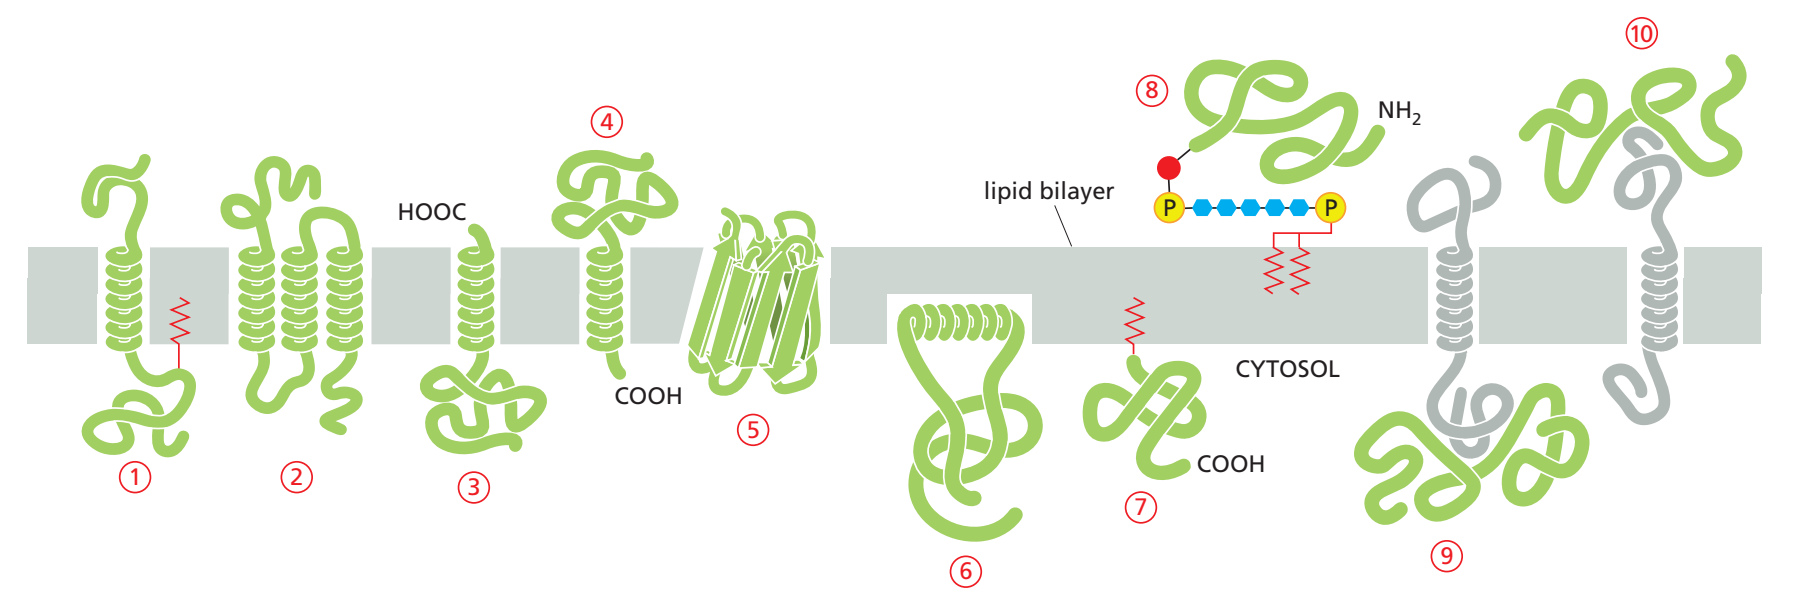
先找真正穿过双层的部分,再看只停在一侧的蛋白。末端标签和锚定位置帮助判断蛋白的哪一部分暴露于胞质。20
冷冻断裂提供了从双层内部观察这些结构的办法:膜往往沿疏水内部裂开,断裂面上可以看见凸起的颗粒和相应的凹坑。结合其他证据,这些颗粒被辨认为嵌在膜中的蛋白质或蛋白复合体;单靠一颗凸起的外形,当然还认不出它是哪一种运输体。
也有蛋白根本不需要穿过双层。外周膜蛋白借助静电作用或与其他膜蛋白结合停在表面,改变离子强度或 pH,有时就能把它们释放下来。脂锚蛋白则以共价连接的脂质固定:胞质侧常见肉豆蔻酰、棕榈酰或异戊二烯基锚,非胞质侧常见糖基磷脂酰肌醇(GPI)锚。某些脂化还可逆,使蛋白在膜与胞质之间重新分配。
这些蛋白的朝向在合成、插膜和膜泡运输中建立,并不会因为膜很流动就随便翻个身。受体在外侧结合配体,胞质结构域接着改变酶活性或招募其他蛋白;黏附蛋白连接邻近细胞或细胞外基质;运输体则必须从规定的一面结合并释放底物。拓扑朝向本身就是机制的一部分。
小分子怎样穿过这道边界
通道与载体,动作有什么不同
先比较下面两种通路。通道开放时,膜两侧之间形成可供特定物质通过的含水通路;载体则先结合底物,再改变构象,把同一结合部位先后暴露给两侧。后者有点像只能轮流开两边门的小隔间,但真正运输的是分子的结合、释放和蛋白构象变化。若两边一直同时敞开,载体精细控制运输循环的能力就保不住了。21
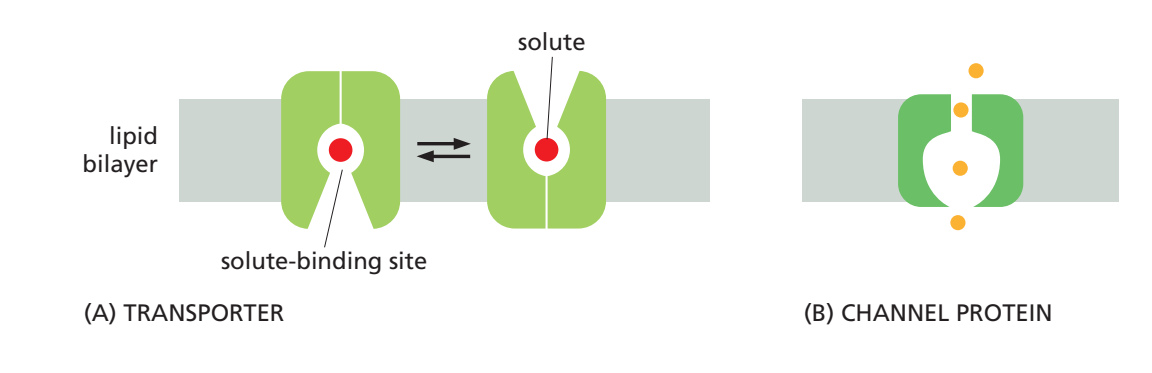
左侧载体把结合部位交替暴露给两面,右侧通道在开放时提供贯通路径。图中的绿色结构只表示工作原理,不对应统一的真实蛋白外形。22
通道的选择性与门控是两个相关但不同的问题:什么能通过,和什么时候允许通过。选择性滤器与离子的大小、电荷、脱水代价有关;门控则可以响应电压、配体、机械力或温度。开放概率和单通道电导共同影响总体电流。开放以后,离子沿自身电化学势降低的方向流动。
K\(^+\) 通道提供了一个很好的反直觉例子:Na\(^+\) 更小,为什么反而常被挡在外面?如果把孔道当成厨房筛子,这里就解释不下去了。水中的离子周围有水合层;进入狭窄滤器时,它必须失去部分水分子,而通道内的氧原子需要提供足够有利的相互作用来补偿。
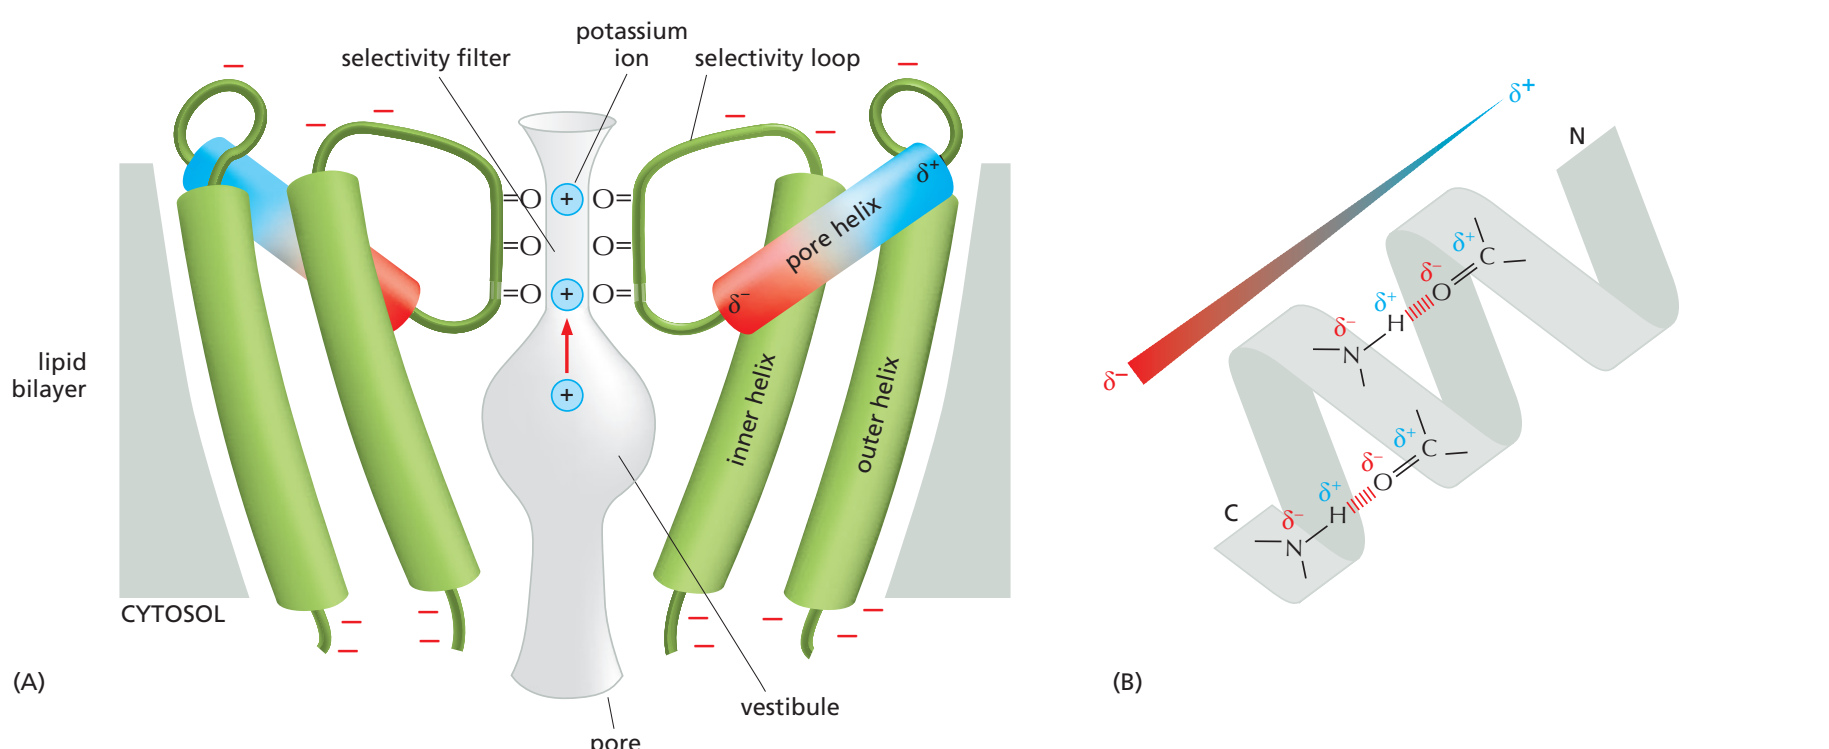
图 A 为了看清内部只显示部分亚基,图 B 放大滤器。沿离子的路线找到胞质侧入口、腔室和最狭窄的滤器。23
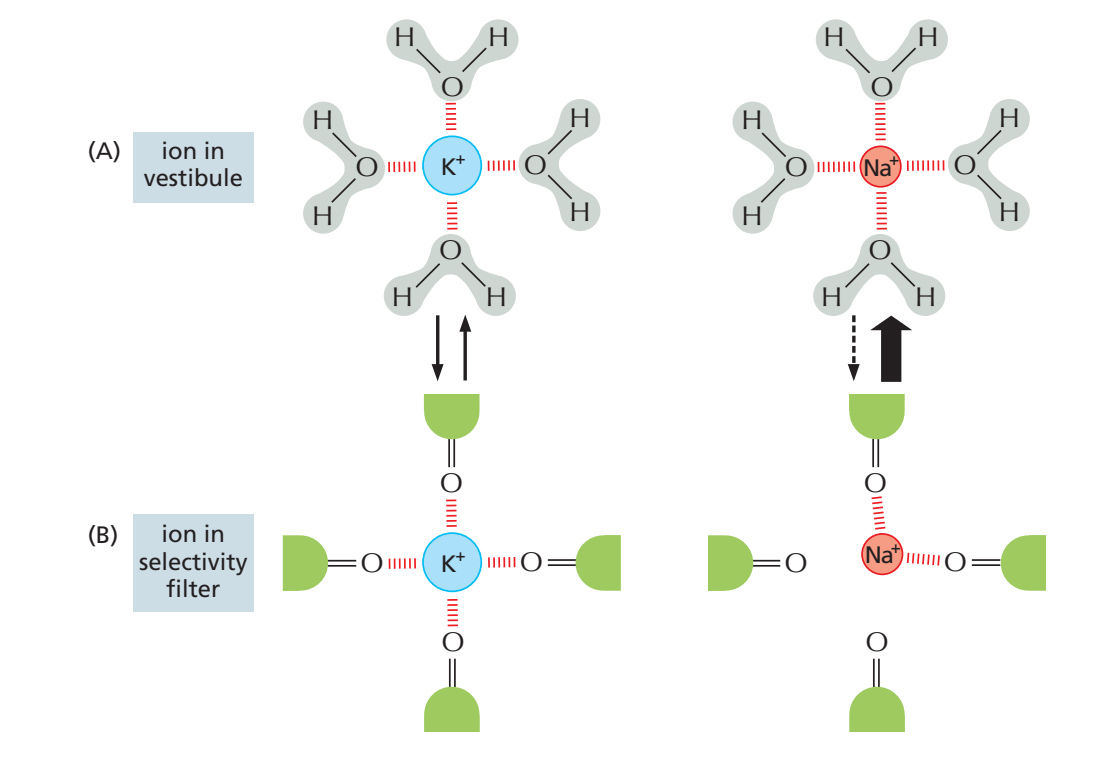
上排是水合离子,下排是进入滤器后的配位示意。滤器羰基氧的排列能较好补偿 K⁺ 失水的代价;更小的 Na⁺ 在这个位置反而不能获得同样的补偿。24
这是理解经典 K\(^+\) 选择性的一种结构与能量解释。通道并不是只量裸离子的直径,滤器也会发生热运动;具体通道的动态结构和不同离子结合状态,还会进一步影响选择性。先把失水代价接到结构上,就已经比“孔小所以筛选”多走了关键一步。25
水通道蛋白(aquaporin)常组成四聚体,而每个单体各有一条水通路。水分子在狭窄处排成单列通过,孔道的几何形状与电性同时限制离子进入。下图还展示了水分子取向与质子传递问题:高水通量必须与维持离子梯度兼容。部分家族成员能运输甘油等小分子,其选择性需要具体看亚型。
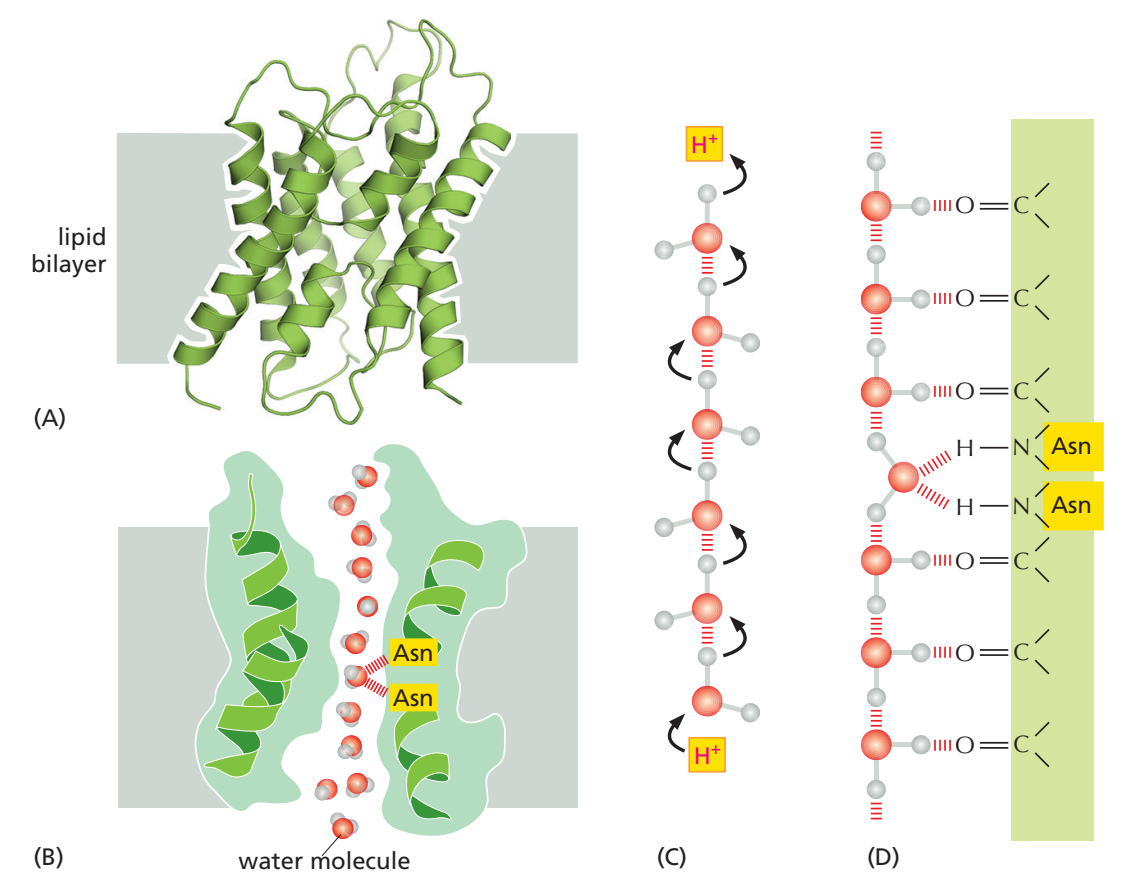
A、B 沿单体看水通路;C、D 比较连续水链与孔道约束下的取向。后两幅帮助理解质子通透问题,图示的氢键安排是简化机制模型。26
载体怎样把底物送到另一面
以 SLC2 家族的葡萄糖载体 GLUT 为例,面向细胞外开放时,葡萄糖可以进入结合位点;随后蛋白闭合外侧入口,形成两面暂时都不开放的闭塞态(occluded state),再向胞质侧开放,葡萄糖便有机会释放。空载体也能转换构象,开始下一次运输。
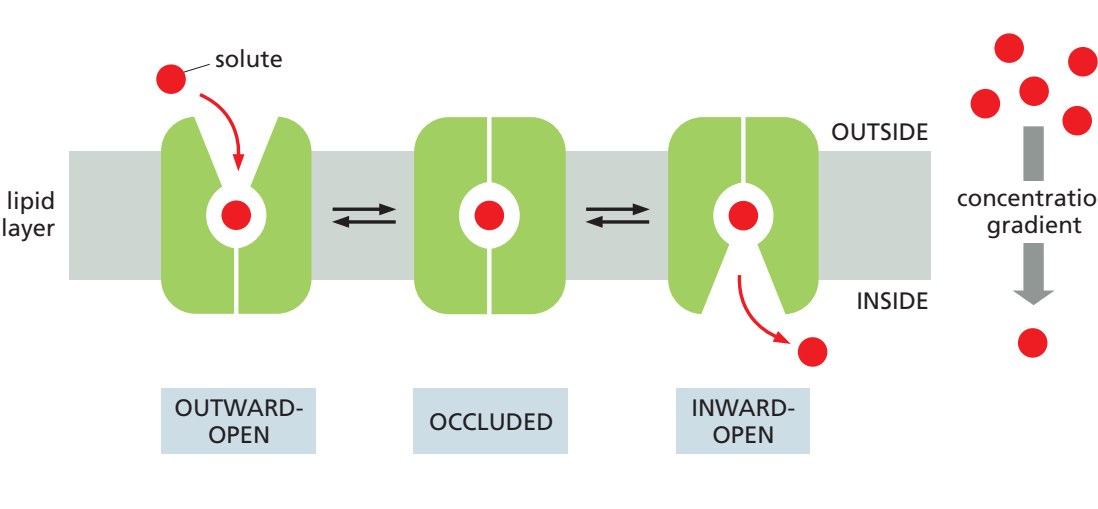
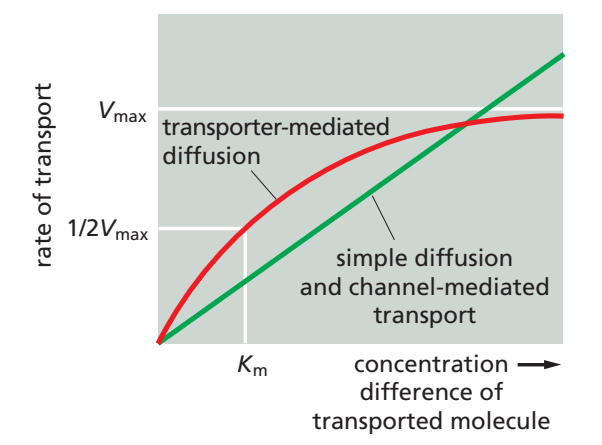
GLUT 的这个循环可以反向进行。外侧葡萄糖较多时,外侧结合和向内输送的事件在总体上占优势;梯度反过来,净运输也可以反向。底物每次都要经过结合和构象变化,有限数量的载体因而会出现最大运输能力。能够竞争同一结合位点的相似分子还可能互相抑制运输,这也为辨认底物选择性提供了实验线索。通道在很高的离子浓度等条件下也可饱和,所以“会不会饱和”不能单独作为辨认载体与通道的绝对标准。
改变膜上的载体数量,也是细胞调节通量的办法。胰岛素促进骨骼肌和脂肪细胞中含 GLUT4 的囊泡转位到质膜,增加可供葡萄糖通过的载体,而不是把 GLUT4 变成直接烧 ATP 的葡萄糖泵。相关组织差异见胰岛素的作用。
浓度与电位怎样共同决定方向
有了通路,还得知道物质往哪边走。对不带电的葡萄糖,在其他条件相同的简化情形下,浓度差就给出了净扩散方向。对离子,还要看电位:假设外侧 Na\(^+\) 较多、胞内又相对带负电,浓度差和电作用都支持 Na\(^+\) 内流;对胞内浓度较高的 K\(^+\),浓度差倾向于让它流出,负的胞内电位却倾向于把它留住。两项作用可以同向,也可以相互抵消。
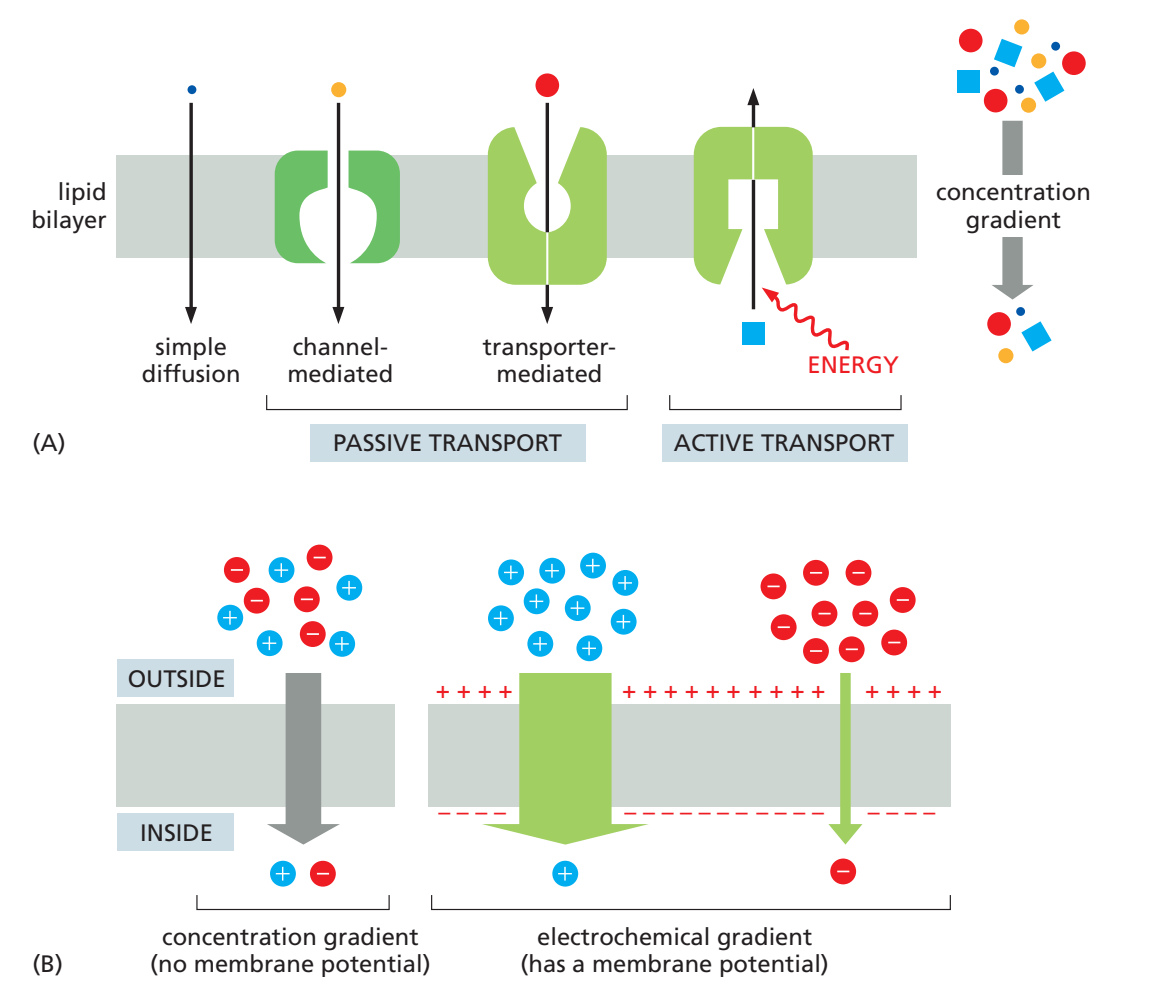
先比较上排箭头与浓度分布,再看下排带电溶质:出现膜电位后,浓度差不再单独决定净流向。29
在温度恒定、两侧活度可以近似用浓度表示时,离子 X 从一侧 1 移到另一侧 2 的摩尔自由能变化为
\(R\) 是气体常数,\(T\) 是绝对温度,\(z\) 是离子的带符号价数,\(F\) 是法拉第常数,\(\psi\) 是电势。第一项比较目的侧与出发侧的浓度;第二项同时考虑电荷和电势变化。对中性溶质,\(z=0\),电势项消失。若 \(\Delta G<0\),所写方向在热力学上有利;若 \(\Delta G>0\),就需要耦联其他有利过程。即使方向有利,没有合适通路时,实际通量仍可能极小。
把两个方向都代入一次:一个示例计算
假设温度为 310 K,某一价阳离子的胞外浓度是胞内的 10 倍,胞内比胞外低 60 mV。这是用于读公式的设定,不是一组实验数据。取方向为“胞外→胞内”:
两项合计约 \(-11.7\ \mathrm{kJ\,mol^{-1}}\),都支持内流。若把运输方向反过来,浓度比和电势差都要反过来,结果变为约 \(+11.7\ \mathrm{kJ\,mol^{-1}}\)。对阴离子还要改变 \(z\) 的符号,不能直接照搬阳离子的判断。
更完整的通量、渗透和电生理关系见跨膜转运的自由能差及细胞的电活动。
细胞怎样建立并使用离子梯度
Na⁺/K⁺ 泵:让结合与释放朝着不同的方向
动物细胞通常维持胞内低 Na\(^+\)、高 K\(^+\)。Na\(^+\) 越积越多在外侧,继续把它送出去就越不利;这时需要把运输与 ATP 水解耦联起来。Na\(^+\)/K\(^+\)-ATPase 每个常规循环消耗一个 ATP,将 3 个 Na\(^+\) 送出、2 个 K\(^+\) 带入。
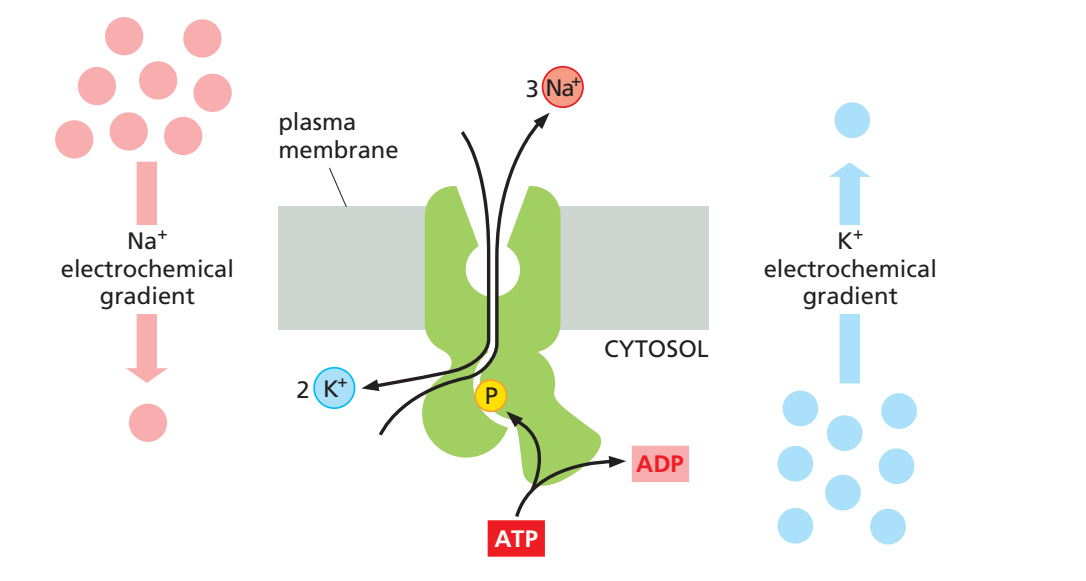
先数离子,再看方向:每循环 3 Na⁺ 出、2 K⁺ 入,净移出一个正电荷。这张图概括收支,构象变化见相邻正文。30
可以从朝胞质开放的状态开始跟一圈。泵先在内侧结合 Na\(^+\),ATP 将磷酸基转移到泵的一个天冬氨酸残基上。磷酸化与后续构象变化相连,离子短暂被闭塞在蛋白内部;当外侧通路开放时,结合位点对 Na\(^+\) 的亲和力降低,Na\(^+\) 释放到胞外。
随后,外侧 K\(^+\) 结合,促进去磷酸化。泵又经过闭塞状态,返回朝胞质开放的构象,并把 K\(^+\) 释放到胞内。这里真正实现定向运输的,是不同构象下的开放方向、离子亲和力和化学反应相互配合;ATP 水解使持续按这一方向运行成为可能。常用的 E1、E2 名称,就是循环中两类主要构象的简称。31
由于循环中出现蛋白质的磷酸化中间体,这类泵称为 P 型 ATPase。肌质网的 SERCA 和质膜上的 PMCA 也是 P 型泵,但运输的是 Ca\(^{2+}\),离子结合和循环细节应分别看待。它们帮助细胞把升高的胞质 Ca\(^{2+}\) 降下来,为下一轮信号响应恢复条件。
Na⁺ 的回流怎样带来葡萄糖的积累
钠钾泵建立了 Na\(^+\) 向内流动的强烈倾向,其他载体可以利用这份梯度。SLC5 家族的 Na\(^+\)—葡萄糖同向转运体 SGLT 就是一个例子。外侧 Na\(^+\) 结合后,有利于载体结合糖;结合齐全的载体较容易完成向内转换,两者随后在胞质侧释放。蛋白结构让这些步骤相互依赖,糖的运输因此与 Na\(^+\) 的运输发生耦联。
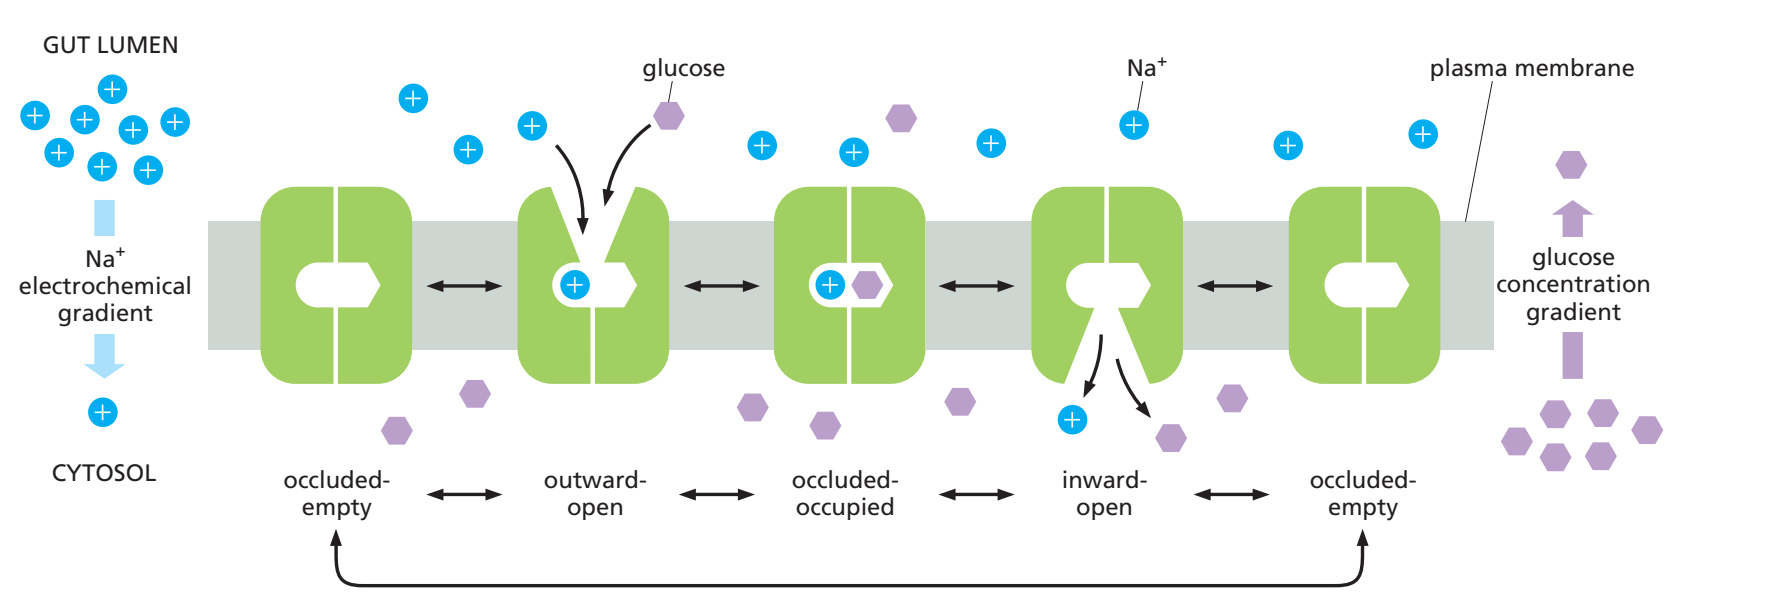
从左向右跟随结合位点,看 Na⁺ 与糖在哪一面结合、在哪一面释放。图用单个 Na⁺ 图标表达原理,不表示所有 SGLT 亚型都是 1∶1 计量。32
如果葡萄糖已经在胞内积累,继续输入它本来需要正的自由能;只要耦联的 Na\(^+\) 内流释放足够多的自由能,整个循环仍可向内运行。人 SGLT1 通常以 2 Na\(^+\) 耦联一个糖分子,SGLT2 则通常是 1 Na\(^+\) 对一个葡萄糖。计量会改变能达到的浓集程度,不能只从原则图上的小球数量推断。33
现在把几种机器放回肠上皮细胞。顶端膜面向肠腔,SGLT1 利用 Na\(^+\) 梯度把葡萄糖收入;基底外侧膜的 GLUT 让胞内葡萄糖向间质释放;同侧的 Na\(^+\)/K\(^+\) 泵再将进入的 Na\(^+\) 排出,维持下一轮吸收所需的梯度。一个葡萄糖跨过整个细胞的过程,便由两种不同载体接力完成。
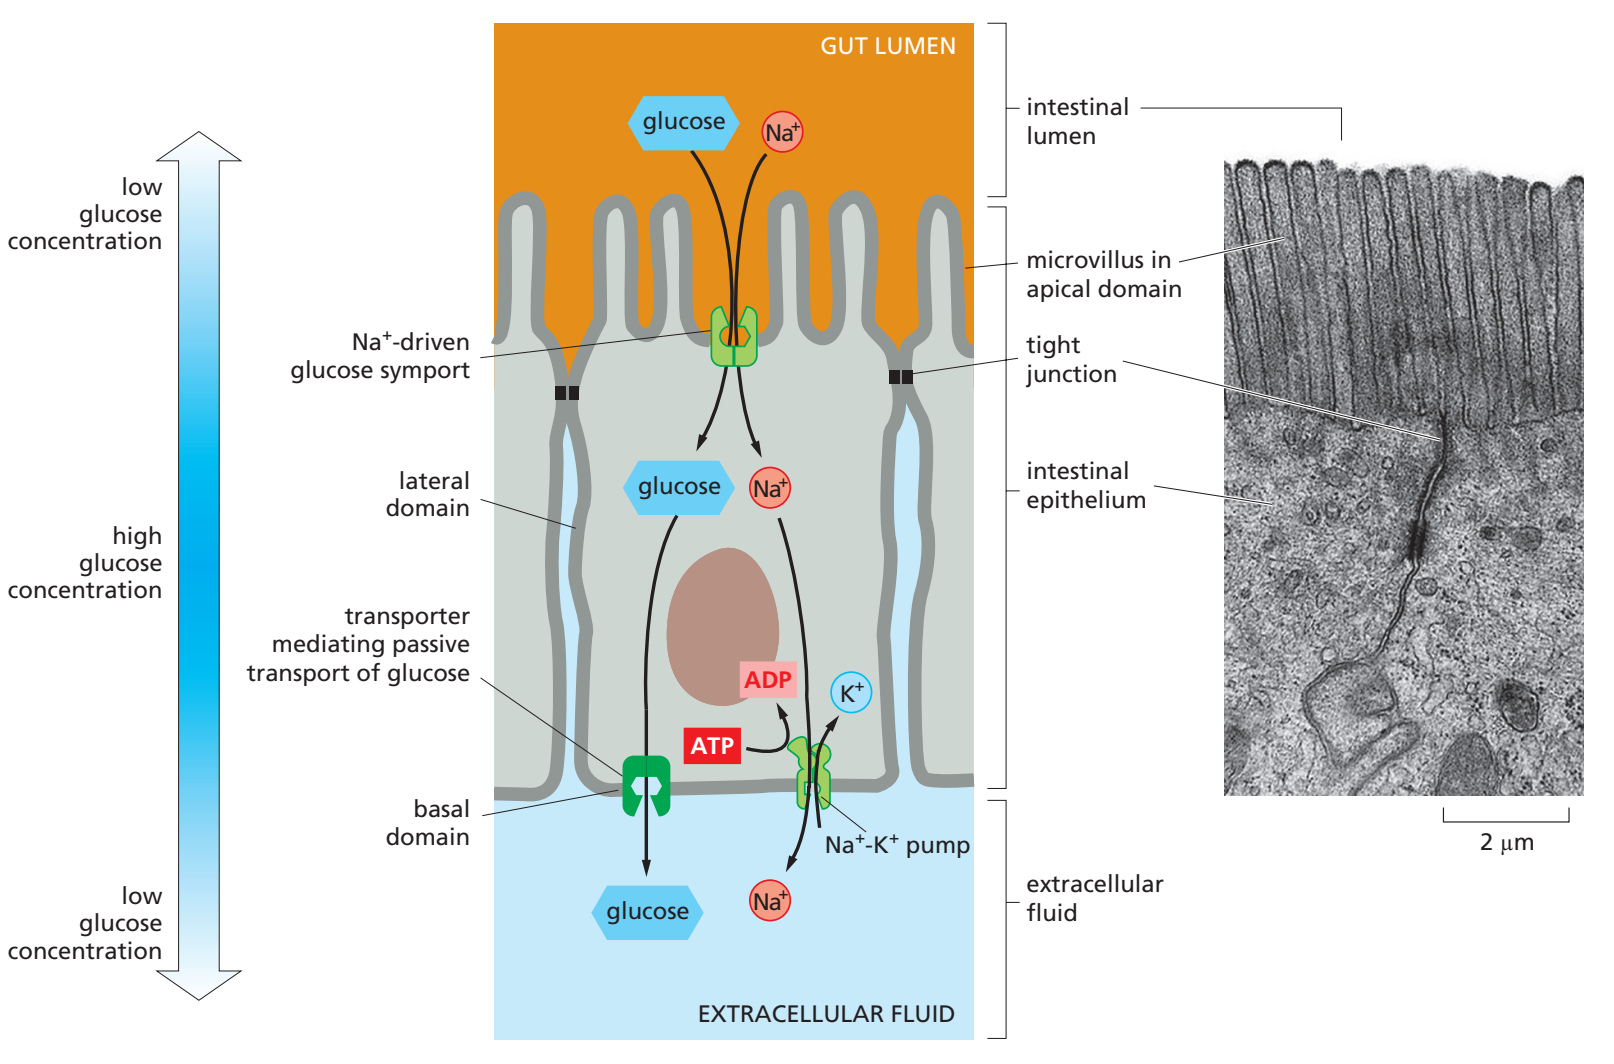
沿肠腔→细胞→细胞外液追踪葡萄糖,再单独追踪 Na⁺。图突出跨细胞运输;紧密连接具有选择性旁细胞通透性,不是对一切溶质绝对密封。34
这里还用到了膜的分区:顶端与基底外侧的蛋白质组成不同,细胞连接帮助维持这种极性。若把所有载体均匀撒到表面,整齐的跨细胞接力就难以成立。肠道与肾脏的具体组合分别见单糖吸收和近端小管回收。
同向转运让耦联的底物朝同一方向移动,反向转运则使它们朝相反方向移动。动物细胞经常利用 Na\(^+\) 梯度,植物、真菌和许多细菌则大量使用 H\(^+\) 梯度。方向取决于所有底物的计量与自由能变化之和:Na\(^+\)/Ca\(^{2+}\) 交换体通常借助 Na\(^+\) 内流排出 Ca\(^{2+}\),当膜电位和浓度条件显著改变时,也可能反向工作。“泵出去”是某个生理状态下的结果,蛋白质不会因此获得一张永远禁止倒车的交通标志。
其他运输机器怎样利用能量
V 型 ATPase 通过 ATP 水解驱动旋转,将 H\(^+\) 泵入内体、溶酶体等区室,也可在特定细胞的质膜上工作。F 型复合体常沿相反的能量转化方向运行:H\(^+\) 顺梯度流动驱动旋转,进而合成 ATP;条件改变时也能反向水解 ATP 并泵出 H\(^+\)。它们的常见生理方向不同,但旋转原理相关,详见细胞器与能量转换。
ABC 转运体利用核苷酸结合结构域的 ATP 结合、水解与重置,驱动跨膜结构域的构象循环,运输的底物包括脂质、胆汁酸和药物等。光驱动泵则把吸收光子引发的分子变化接到离子转移上。能量来源的分类与蛋白质结构的分类可以交叉使用,实际机制不必都套成同一种载体模型。
| 运输方式 | 主要动作与能量关系 | 例子 |
|---|---|---|
| 单纯扩散 | 直接穿过双层,净流动沿化学势降低方向 | O\(_2\)、CO\(_2\) |
| 通道运输 | 开放通路,溶质顺电化学势流动 | K\(^+\) 通道、水通道 |
| 被动载体 | 结合与交替开放,顺相应梯度运输 | GLUT |
| 次级主动运输 | 将不同溶质的跨膜移动耦联 | SGLT、Na\(^+\)/Ca\(^{2+}\) 交换体 |
| P 型泵 | 蛋白磷酸化中间体参与离子运输循环 | Na\(^+\)/K\(^+\) 泵、SERCA、PMCA |
| V/F 型旋转机器 | 旋转连接 ATP 反应与离子流,方向依系统和条件而定 | 区室酸化、ATP 合成 |
| ABC 转运体 | 核苷酸结构域与跨膜结构域共同完成循环 | 多种脂质与药物转运体 |
CFTR 用 ATP,为什么仍称为通道?(自编)
CFTR 来自 ABC 转运体家族,其 ATP 结合与水解参与开关调节。它允许 Cl\(^-\) 和 HCO\(_3^-\) 通过,这是否说明它把阴离子主动泵向高电化学势的一侧?
解析
需要区分开关的耗能与溶质通过时的驱动力。CFTR 的门控与 ATP 反应有关,但开放后的阴离子沿自身电化学势降低的方向流动;ATP 没有在这里与固定计量的阴离子逆梯度运输相耦联。判断通道的运输方式,要跟着离子的跨膜过程看。35
货物太大时,膜把它包起来
蛋白质复合体、细菌或一整滴胞外液,显然不能靠 GLUT 这样的结合口袋逐个搬进来。内吞用的是另一种办法:质膜包围货物,向内出芽,再分离成囊泡。货物进入了细胞内部的空间,却仍在囊泡腔中,与胞质之间隔着膜。
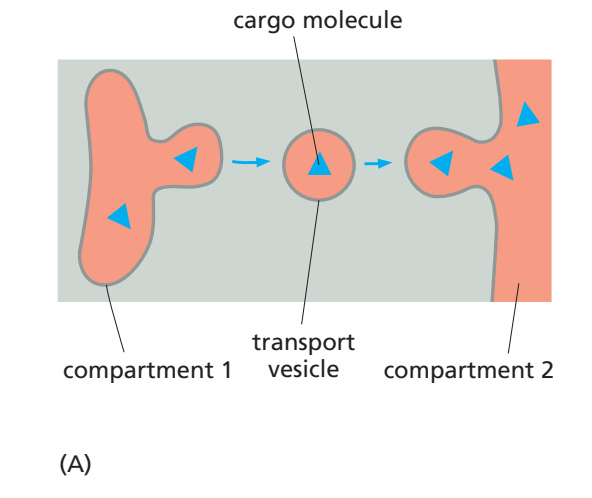
橙色表示区室腔内,灰绿色表示周围胞质,蓝色三角是货物。沿出芽与融合追踪:膜没有翻面,货物也没有直接穿过脂双层。36
这解释了前面留下的方向问题。内质网和高尔基体腔内添加的糖链,随膜泡运输到达质膜时朝向胞外;质膜内吞后,这些糖链朝向囊泡腔。外排与内吞不断改变质膜面积,脂质合成、膜回收和蛋白质分选又把它们接到细胞整体的膜平衡上。
从包被小窝到内吞囊泡
受体在胞外侧结合货物,胞质尾部的内吞信号则由适配蛋白识别。适配蛋白把受体和网格蛋白(clathrin)包被接起来,使货物在局部集中,也帮助组织弯曲的膜面。下面的电镜图把不同形态按形成过程排列:浅凹陷、加深的小窝、带细颈的结构,最后是分离的包被小泡。37
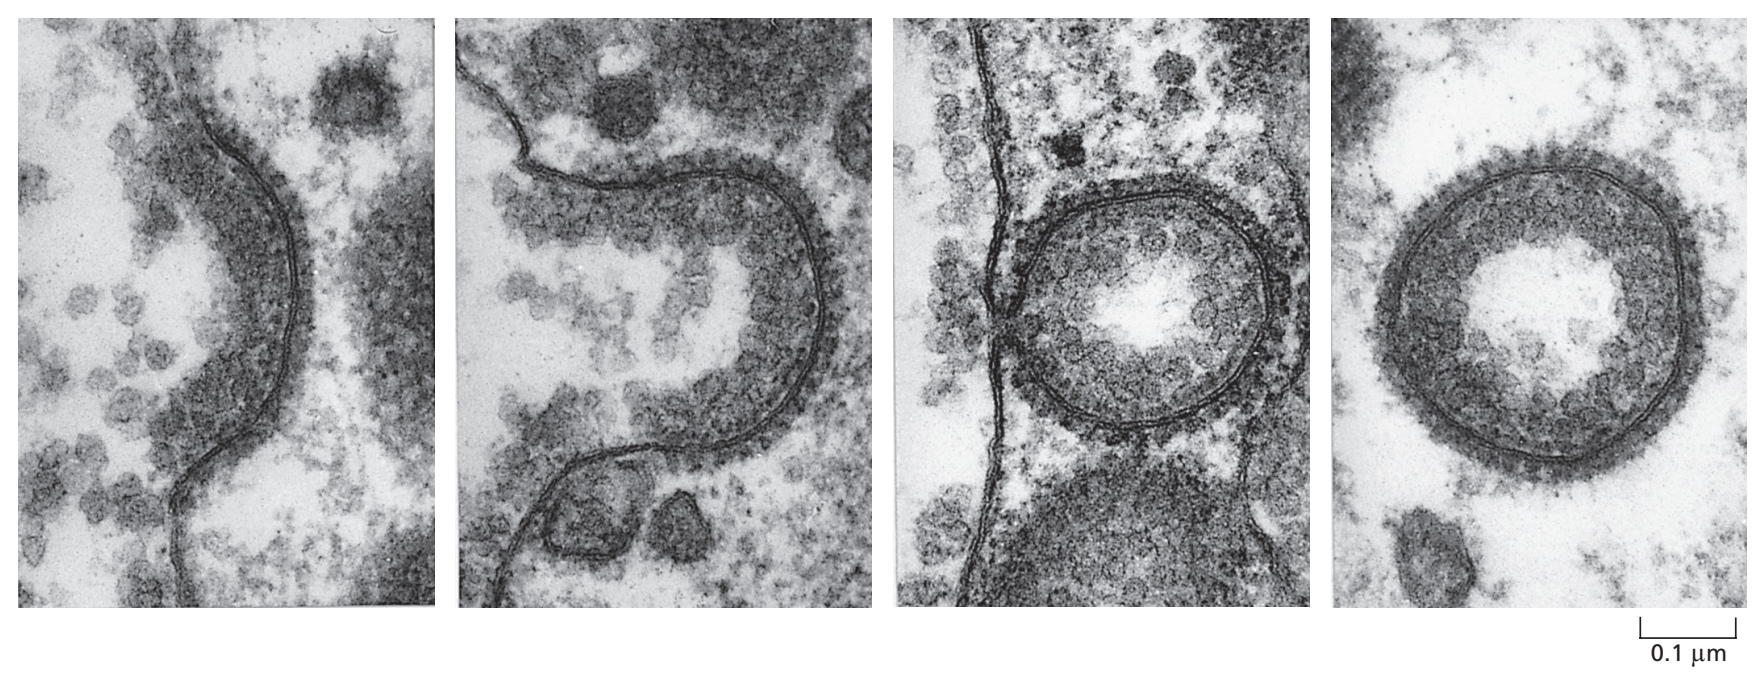
看胞质侧毛茸茸的包被和逐渐收窄的膜颈。腔面另一层致密物质是被摄取的脂蛋白颗粒。四幅来自不同结构的截面,并非同一小泡的延时录像;右下角比例尺为 0.1 μm。38
在许多网格蛋白内吞事件中,发动蛋白(dynamin)在膜颈处装配,GTP 反应与结构变化参与最后的切割。包被随后卸除,新囊泡把货物交给早期内体;在那里,受体可能回收,货物可能走向降解,也可能送往另一侧膜面。后续的分选与成熟见内膜系统、蛋白质分选与囊泡运输。
吞噬、大胞饮和膜窖
吞噬从颗粒与表面受体结合开始,肌动蛋白驱动膜伸展、包围细菌或死亡细胞,最后形成吞噬体。巨噬细胞和中性粒细胞是熟悉的专业吞噬细胞。大胞饮则常由膜褶皱卷回,包进较大体积的胞外液;它能持续取样,也会受到生长因子或病原体信号影响。小胞饮是较小囊泡摄取液相的总称,底下还包括多种分子机制。
膜窖(caveola)则有很有辨识度的瓶形外观,常由 caveolin 与 cavin 蛋白系统组织,在脂肪、内皮和肌细胞等处较常见。
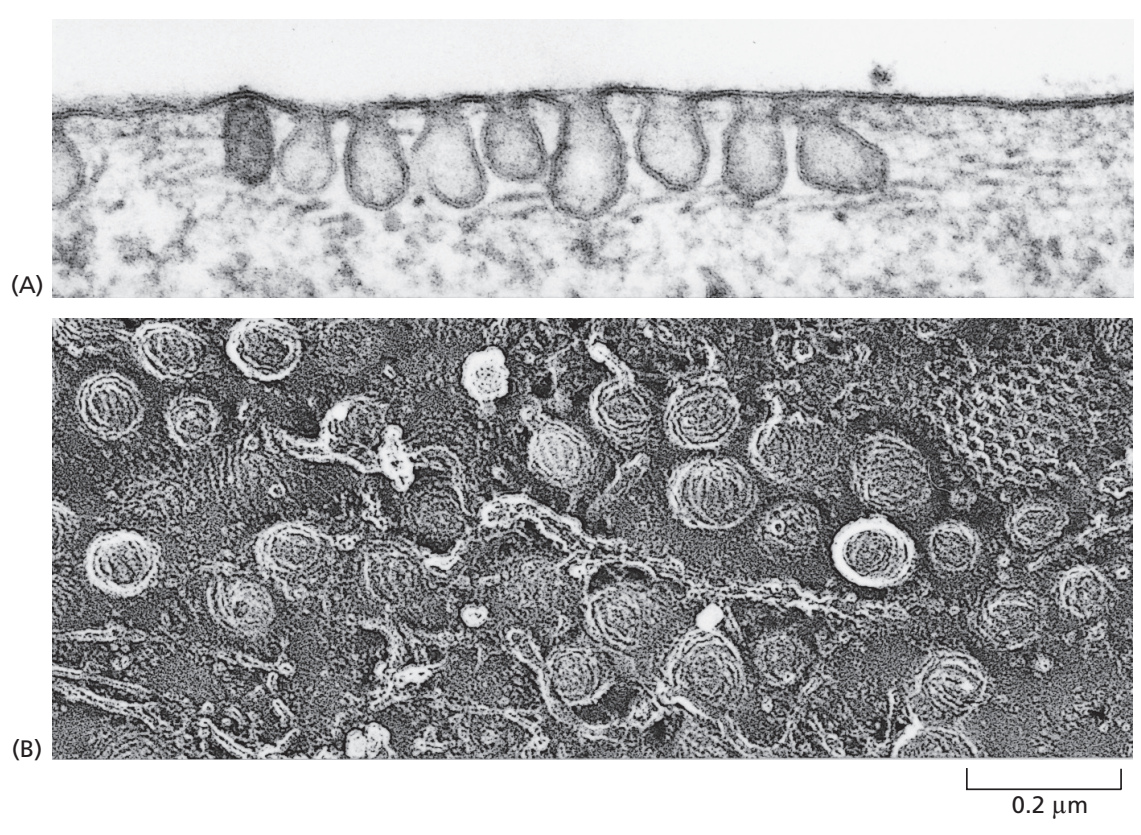
上图看质膜下的一排内陷,下图从胞质侧看膜窖表面的组织。瓶形外观标识一种膜结构,单凭一张静态图不能判断它是否正在内吞。39
许多膜窖相对稳定。当膜张力突然上升时,一部分可以展平,释放额外表面积;表面原先留着的褶余,临时派上了用场。它们还参与信号组织及某些内吞过程,但不能把所有膜窖都画成一队不停出发的运输小泡。机械展平的作用已有直接实验支持。40
实际研究某种货物的入口时,还要结合超微结构、遗传扰动、时间过程与最终去向。同一种货物在不同细胞中可能走不同路线;测到胞内荧光增加之后,才刚有了继续追踪的理由。
把膜拆开,再装回去
到这里,膜已经是一张相当忙碌的界面了。但若想判断“这个蛋白本身能不能运输某种离子”,忙碌反而会带来麻烦:细胞里同时存在别的通道、泵和调节蛋白,观察到的变化可能经过好几步。
一个有力的做法,是纯化目标蛋白,再将它重构进成分已知的脂质体,形成蛋白脂质体(proteoliposome)。这样,原本混在一起的许多变量可以分别控制。
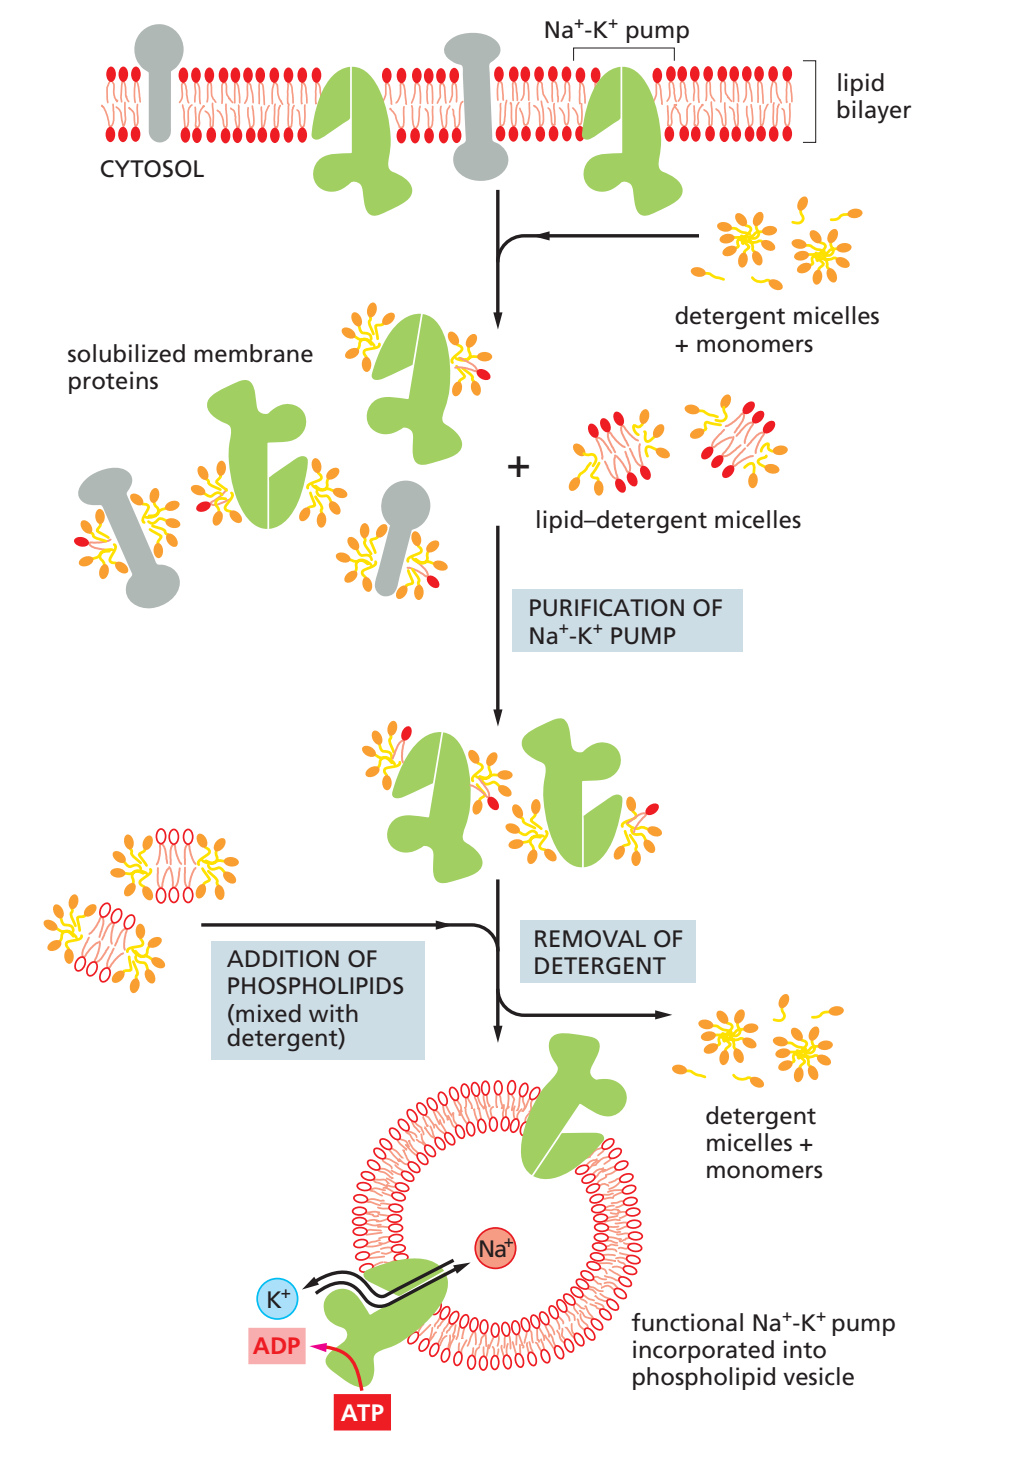
沿去垢剂溶解、蛋白与脂质重新混合、去除去垢剂的过程看。最后得到的膜同时包含已知脂质与目标蛋白,可以单独检验运输功能。41
随后可以测放射性或荧光底物的通量、电流、ATP 水解和梯度耗散。每项读出回答的问题不同:ATPase 活性说明发生了水解,却不能独自证明溶质被有效运到另一面;通量增加也需要排除膜本身漏了。空脂质体、失活蛋白、不同朝向和受控膜电位等对照,帮助我们把一次观察接到具体的运输循环。
电镜让我们看见膜,融合与 FRAP 让我们看见运动,单粒子追踪揭示运动的限制,脂质组学结合叶片选择性处理辨认两面的组成,重构实验则把某项功能重新交给一个已知蛋白。几种证据接在一起,薄薄的边界才逐渐有了可以检验的内部细节。
参考资料与延伸阅读
本页主要依据 Molecular Biology of the Cell 第 7 版第 10、11 章,膜泡拓扑和内吞参照第 12、13 章。各图的图号、印刷页与处理方式见图注来源。
- Alberts B, Heald R, Johnson A, et al. Molecular Biology of the Cell. 7th ed. W. W. Norton; 2022。
- Frye LD, Edidin M. The rapid intermixing of cell surface antigens after formation of mouse-human heterokaryons. Journal of Cell Science. 1970;7:319–335.
- Singer SJ, Nicolson GL. The fluid mosaic model of the structure of cell membranes. Science. 1972;175:720–731.
- Lorent JH, et al. Plasma membranes are asymmetric in lipid unsaturation, packing and protein shape. Nature Chemical Biology. 2020;16:644–652.
- Sinha B, et al. Cells respond to mechanical stress by rapid disassembly of caveolae. Cell. 2011;144:402–413.
-
膜的双层、自组装、流动性与膜蛋白组织主要依据 Alberts 等,Molecular Biology of the Cell,第 7 版,第 10 章(2022);可在线参阅第 4 版的膜结构章节。 ↩↩
-
Alberts B, Heald R, Johnson A, et al. Molecular Biology of the Cell. 7th ed. W. W. Norton; 2022,图 10–1,印刷页 603。本站截取教材图版区域,去除页眉与原排版正文,保留图中标记;配中文图注,未重绘。其中 A 的电镜由 Daniel S. Friend 提供,教材注明经 E. L. Bearer 转用。 ↩
-
Alberts B, Heald R, Johnson A, et al. Molecular Biology of the Cell. 7th ed. W. W. Norton; 2022,图 10–8,印刷页 608。本站截取教材图版区域,去除页眉与原排版正文,保留图中标记;配中文图注,未重绘。 ↩
-
Alberts B, Heald R, Johnson A, et al. Molecular Biology of the Cell. 7th ed. W. W. Norton; 2022,图 10–9,印刷页 608。本站截取教材图版区域,去除页眉与原排版正文,保留图中标记;配中文图注,未重绘。B 的冷冻电镜原出处为 Kotouček J 等,Scientific Reports. 2020;10:5595。 ↩
-
通透性、载体与通道的机制主要依据 Molecular Biology of the Cell,第 7 版,第 11 章;可在线参阅第 4 版的膜运输原理。 ↩
-
Alberts B, Heald R, Johnson A, et al. Molecular Biology of the Cell. 7th ed. W. W. Norton; 2022,图 10–10,印刷页 609。本站截取教材图版区域,去除页眉与原排版正文,保留图中标记;配中文图注,未重绘。 ↩
-
Alberts B, Heald R, Johnson A, et al. Molecular Biology of the Cell. 7th ed. W. W. Norton; 2022,图 10–11,印刷页 609。本站截取教材图版区域,去除页眉与原排版正文,保留图中标记;配中文图注,未重绘。 ↩
-
Alberts B, Heald R, Johnson A, et al. Molecular Biology of the Cell. 7th ed. W. W. Norton; 2022,图 10–32,印刷页 628。本站截取教材图版区域,去除页眉与原排版正文,保留图中标记;配中文图注,未重绘。图解依据 Frye LD、Edidin M,Journal of Cell Science. 1970;7:319–335(原始研究)。 ↩
-
流动镶嵌模型的原始论述见 Singer 与 Nicolson 的1972 年论文;现代膜研究保留其动态双层框架,同时加入跨叶片不对称、纳米域、骨架围栏与蛋白拥挤等层次。 ↩
-
Alberts B, Heald R, Johnson A, et al. Molecular Biology of the Cell. 7th ed. W. W. Norton; 2022,图 10–33,印刷页 628。本站截取教材图版区域,去除页眉与原排版正文,保留图中标记;配中文图注,未重绘。 ↩
-
Alberts B, Heald R, Johnson A, et al. Molecular Biology of the Cell. 7th ed. W. W. Norton; 2022,图 10–39,印刷页 632。本站截取教材图版区域,去除页眉与原排版正文,保留图中标记;配中文图注,未重绘。B 的轨迹据 Kusumi A 等,Annual Review of Biophysics and Biomolecular Structure. 2005;34:351–378 改编。 ↩
-
低温 Triton X-100 分离产生的囊泡与多层结构已相对原红细胞膜明显重排,见 Koumanov 等的去垢剂抗性组分研究;因此去垢剂抗性是分离定义,活细胞膜域还需其他证据确认。 ↩
-
Alberts B, Heald R, Johnson A, et al. Molecular Biology of the Cell. 7th ed. W. W. Norton; 2022,图 10–15,印刷页 612。本站截取教材图版区域,去除页眉与原排版正文,保留图中标记;配中文图注,未重绘。 ↩
-
脂质组学、叶片选择性探针和模拟揭示的组成、不饱和度、堆积与扩散不对称,见 Lorent 等的哺乳动物质膜叶片研究。 ↩
-
Alberts B, Heald R, Johnson A, et al. Molecular Biology of the Cell. 7th ed. W. W. Norton; 2022,图 12–39,印刷页 721。本站截取教材图版区域,去除页眉与原排版正文,保留图中标记;配中文图注,未重绘。 ↩
-
血小板 Ca\(^{2+}\) 依赖性 PS 外露、TMEM16F 缺失与促凝活性下降的证据,见 Yang 等的TMEM16F 研究。 ↩
-
Alberts B, Heald R, Johnson A, et al. Molecular Biology of the Cell. 7th ed. W. W. Norton; 2022,图 10–17,印刷页 615。本站截取教材图版区域,去除页眉与原排版正文,保留图中标记;配中文图注,未重绘。 ↩
-
载体和通道的结构分类实质性改编自 osm.bio 《载体蛋白和通道蛋白》固定版本,固定版本贡献者为寸烛盈夜,原文按 CC BY-SA 4.0 许可;相关内容经重组,并用 Alberts 等的载体与主动运输章节交叉核验。 ↩
-
Alberts B, Heald R, Johnson A, et al. Molecular Biology of the Cell. 7th ed. W. W. Norton; 2022,图 11–3,印刷页 639。本站截取教材图版区域,去除页眉与原排版正文,保留图中标记;配中文图注,未重绘。 ↩
-
Alberts B, Heald R, Johnson A, et al. Molecular Biology of the Cell. 7th ed. W. W. Norton; 2022,图 11–24,印刷页 658。本站截取教材图版区域,去除页眉与原排版正文,保留图中标记;配中文图注,未重绘。 ↩
-
Alberts B, Heald R, Johnson A, et al. Molecular Biology of the Cell. 7th ed. W. W. Norton; 2022,图 11–25,印刷页 659。本站截取教材图版区域,去除页眉与原排版正文,保留图中标记;配中文图注,未重绘。 ↩
-
钾通道滤器的结构基础见 Doyle DA 等,Science. 1998;280:69–77,原始结构研究;本文的配位解释沿用 MBoC 第 7 版第 11 章的教学模型。 ↩
-
Alberts B, Heald R, Johnson A, et al. Molecular Biology of the Cell. 7th ed. W. W. Norton; 2022,图 11–20,印刷页 653。本站截取教材图版区域,去除页眉与原排版正文,保留图中标记;配中文图注,未重绘。 ↩
-
Alberts B, Heald R, Johnson A, et al. Molecular Biology of the Cell. 7th ed. W. W. Norton; 2022,图 11–5,印刷页 641。本站截取教材图版区域,去除页眉与原排版正文,保留图中标记;配中文图注,未重绘。 ↩
-
Alberts B, Heald R, Johnson A, et al. Molecular Biology of the Cell. 7th ed. W. W. Norton; 2022,图 11–6,印刷页 641。本站截取教材图版区域,去除页眉与原排版正文,保留图中标记;配中文图注,未重绘。 ↩
-
Alberts B, Heald R, Johnson A, et al. Molecular Biology of the Cell. 7th ed. W. W. Norton; 2022,图 11–4,印刷页 640。本站截取教材图版区域,去除页眉与原排版正文,保留图中标记;配中文图注,未重绘。 ↩
-
Alberts B, Heald R, Johnson A, et al. Molecular Biology of the Cell. 7th ed. W. W. Norton; 2022,图 11–15,印刷页 648。本站截取教材图版区域,去除页眉与原排版正文,保留图中标记;配中文图注,未重绘。 ↩
-
Na⁺/K⁺ 泵的磷酸化中间体、内外向构象与 3 Na⁺/2 K⁺ 计量见 MBoC 第 7 版第 11 章;循环步骤也可参阅 Basic Neurochemistry 的Na⁺/K⁺ 泵章节。 ↩
-
Alberts B, Heald R, Johnson A, et al. Molecular Biology of the Cell. 7th ed. W. W. Norton; 2022,图 11–9,印刷页 643。本站截取教材图版区域,去除页眉与原排版正文,保留图中标记;配中文图注,未重绘。 ↩
-
SGLT 的耦联与构象变化可结合家族结构研究阅读;人 SGLT1 的 2 Na⁺∶1 糖与 SGLT2 的 1 Na⁺∶1 葡萄糖计量分别参见 SGLT1 结构研究和 SGLT2–MAP17 结构研究。 ↩
-
Alberts B, Heald R, Johnson A, et al. Molecular Biology of the Cell. 7th ed. W. W. Norton; 2022,图 11–11,印刷页 645。本站截取教材图版区域,去除页眉与原排版正文,保留图中标记;配中文图注,未重绘。 ↩
-
CFTR 的 ATP 依赖门控、Cl\(^-\)/HCO\(_3^-\) 通道功能及 ABC 家族归属,见 UniProt 审校条目 P13569。 ↩
-
Alberts B, Heald R, Johnson A, et al. Molecular Biology of the Cell. 7th ed. W. W. Norton; 2022,图 12–4,印刷页 687。本站截取教材图版区域,去除页眉与原排版正文,保留图中标记;配中文图注,未重绘。 ↩
-
Alberts B, Heald R, Johnson A, et al. Molecular Biology of the Cell. 7th ed. W. W. Norton; 2022,图 13–51,印刷页 789。本站截取教材图版区域,去除页眉与原排版正文,保留图中标记;配中文图注,未重绘。原电镜为 Perry MM、Gilbert AB,Journal of Cell Science. 1979;39:257–272;材料为鸡卵母细胞摄取脂蛋白的包被结构。 ↩
-
Alberts B, Heald R, Johnson A, et al. Molecular Biology of the Cell. 7th ed. W. W. Norton; 2022,图 13–52,印刷页 790。本站截取教材图版区域,去除页眉与原排版正文,保留图中标记;配中文图注,未重绘。原图为 Rothberg KG 等,Cell. 1992;68:673–682;B 为快速冷冻深蚀图。 ↩
-
Alberts B, Heald R, Johnson A, et al. Molecular Biology of the Cell. 7th ed. W. W. Norton; 2022,图 10–28,印刷页 624。本站截取教材图版区域,去除页眉与原排版正文,保留图中标记;配中文图注,未重绘。 ↩